Tế bào và bào quan
Mô hình
Rê hoặc chạm để xem tên, bấm để đọc mô tả; bấm tên trong chú giải để bay tới cấu trúc. Mô hình dựng bằng thuật toán theo kích thước mô học, màu theo quy ước minh họa.
Mô tả
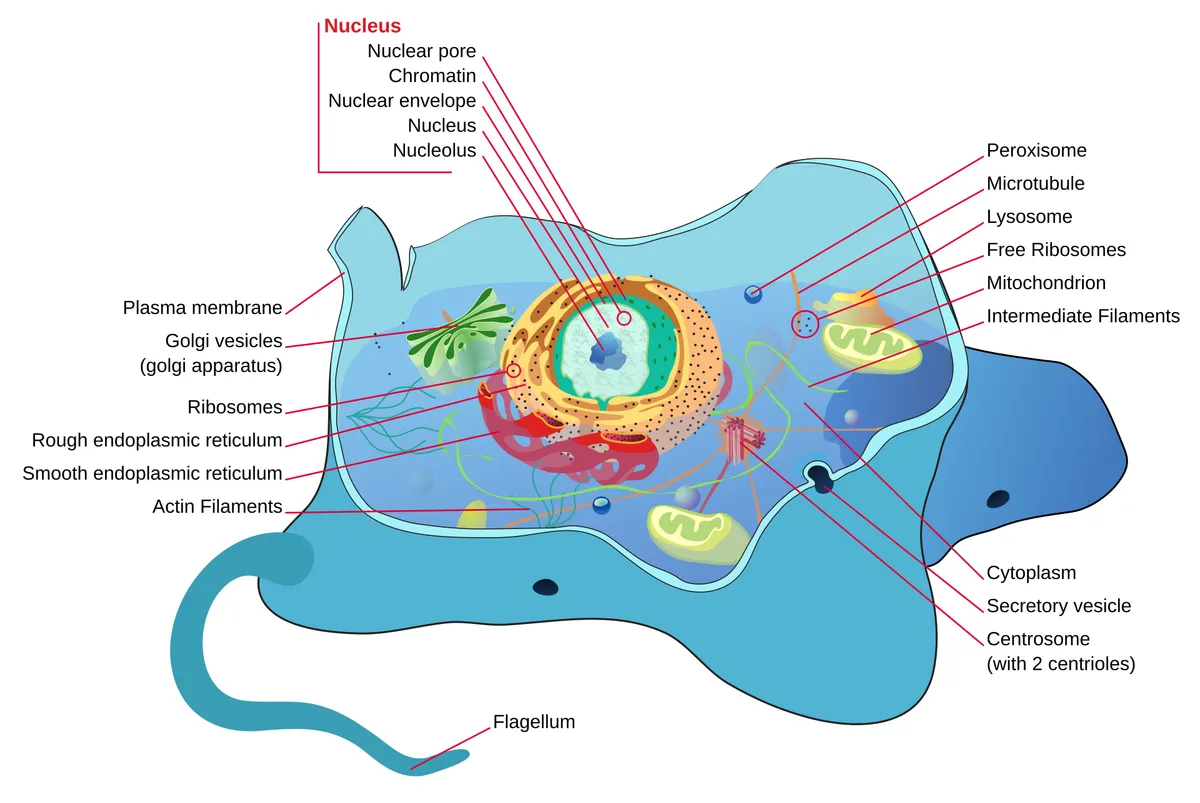
Tế bào nhân thực gồm màng sinh chất bao quanh bào tương và nhân. Trong bào tương có các bào quan có màng (lưới nội chất, bộ Golgi, ty thể, tiêu thể, peroxisome), bào quan không màng (ribosome, trung thể) và bộ khung tế bào. Mỗi bào quan là một khoang chuyên biệt, phối hợp với nhau để tổng hợp, vận chuyển, tạo năng lượng, phân hủy và phân chia.
Màng sinh chất
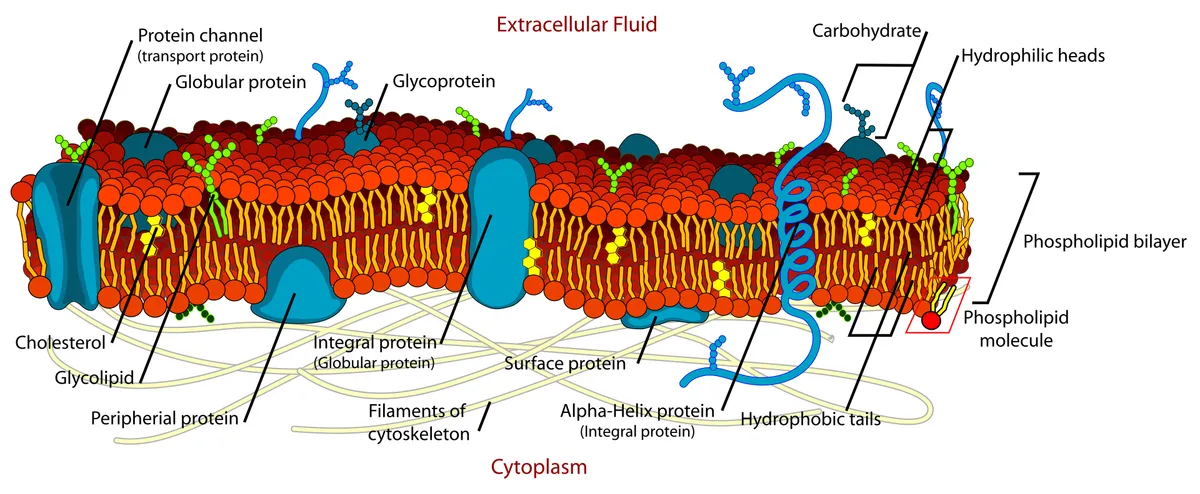
Màng tế bào là lớp kép phospholipid dày khoảng 7–8 nm, đuôi kỵ nước quay vào nhau, xen cholesterol và protein. Theo mô hình khảm lỏng, lipid và nhiều protein di chuyển ngang trong mặt phẳng màng; protein xuyên màng làm kênh, bơm, chất vận chuyển và thụ thể, còn protein ngoại vi bám vào mặt trong hoặc ngoài. Hai lá của màng không giống nhau: phosphatidylserine nằm ở lá trong, khi lật ra ngoài là tín hiệu cho đại thực bào dọn tế bào chết.[1]
Màng không đồng nhất. Cholesterol và sphingolipid có xu hướng tụ thành các vi vùng (bè lipid) ngắn ngủi, nơi tập trung một số thụ thể và phân tử tín hiệu; khái niệm này từng gây tranh cãi vì vùng quá nhỏ và quá nhanh để thấy trực tiếp. Hốc màng (caveolae) là dạng bè lõm sâu 50–100 nm, được caveolin và cavin tạo hình, rất nhiều ở tế bào nội mô, tế bào mỡ và cơ trơn; chúng dẹt ra khi màng bị kéo căng, như một kho dự trữ màng chống rách.[2][3][4]
Mặt ngoài màng được phủ lớp vỏ đường (glycocalyx) gồm chuỗi oligosaccharide của glycoprotein, glycolipid và proteoglycan. Glycocalyx quyết định nhóm máu, giúp tế bào nhận ra nhau và bám dính; ở nội mô mạch máu nó dày tới vài trăm nanomet, cảm nhận lực trượt của dòng máu, ngăn tiểu cầu và bạch cầu bám vào thành mạch, và bị phá hủy nhanh trong nhiễm khuẩn huyết.[5][6]
Nhân tế bào
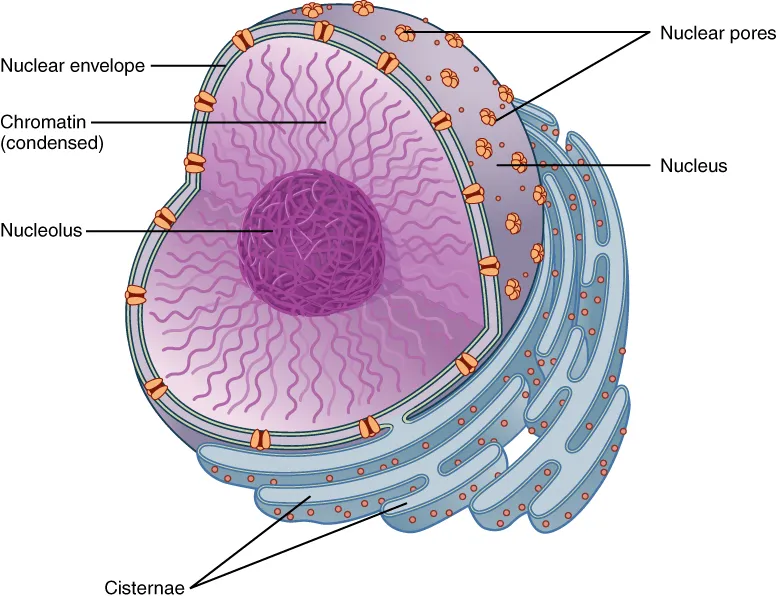
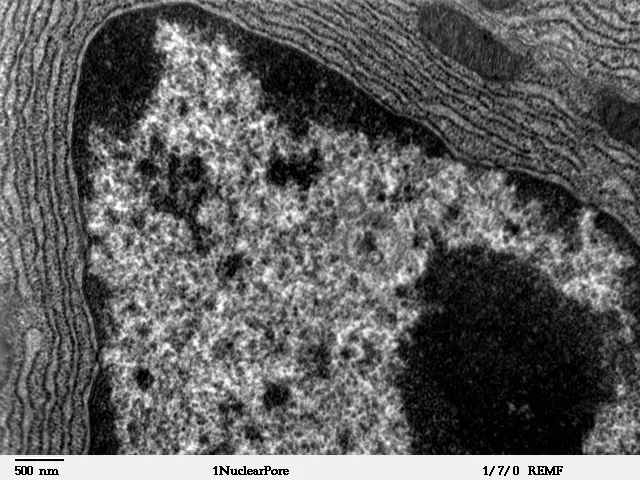
Nhân (đường kính 5–10 µm) được bao bởi màng nhân kép; màng ngoài liền với lưới nội chất hạt và cũng mang ribosome, khoang giữa hai màng thông với lòng lưới nội chất. Mặt trong được lót bởi lá nhân (lamina) bằng lamin A, B, C, vừa giữ hình dạng nhân vừa neo chất nhiễm sắc. Đột biến lamin A gây một nhóm bệnh (laminopathy) như loạn dưỡng cơ Emery–Dreifuss và hội chứng lão hóa sớm Hutchinson–Gilford.[7][8]
Mọi trao đổi giữa nhân và bào tương đi qua lỗ nhân: phức hợp khổng lồ khoảng 110 MDa gồm chừng 1 000 phân tử của khoảng 30 loại nucleoporin, đối xứng bậc tám. Lòng lỗ chứa một “màng lọc” bằng các chuỗi protein giàu phenylalanine – glycine; phân tử nhỏ khuếch tán qua tự do, còn protein lớn và RNA thông tin phải được các thụ thể vận chuyển (importin, exportin) đưa qua, với năng lượng từ gradient Ran-GTP. Mỗi nhân có vài nghìn lỗ.[9][10][11]
Khoảng 2 m DNA được quấn quanh nucleosome rồi gấp nhiều bậc: vòng chất nhiễm sắc, miền liên kết topo (TAD), các khoang hoạt động và bất hoạt, và cuối cùng mỗi nhiễm sắc thể chiếm một “lãnh thổ” riêng. Dị nhiễm sắc đậm đặc, ít phiên mã, thường áp sát lá nhân và quanh hạch nhân; nguyên nhiễm sắc thưa, đang hoạt động, nằm ở giữa. Hạch nhân là vùng không có màng hình thành quanh các cụm gen RNA ribosome, nơi phiên mã rRNA và lắp ráp tiểu đơn vị ribosome trước khi chúng được đưa ra bào tương qua lỗ nhân.[12][13][14][15]
Lưới nội chất, bộ Golgi và đường tiết
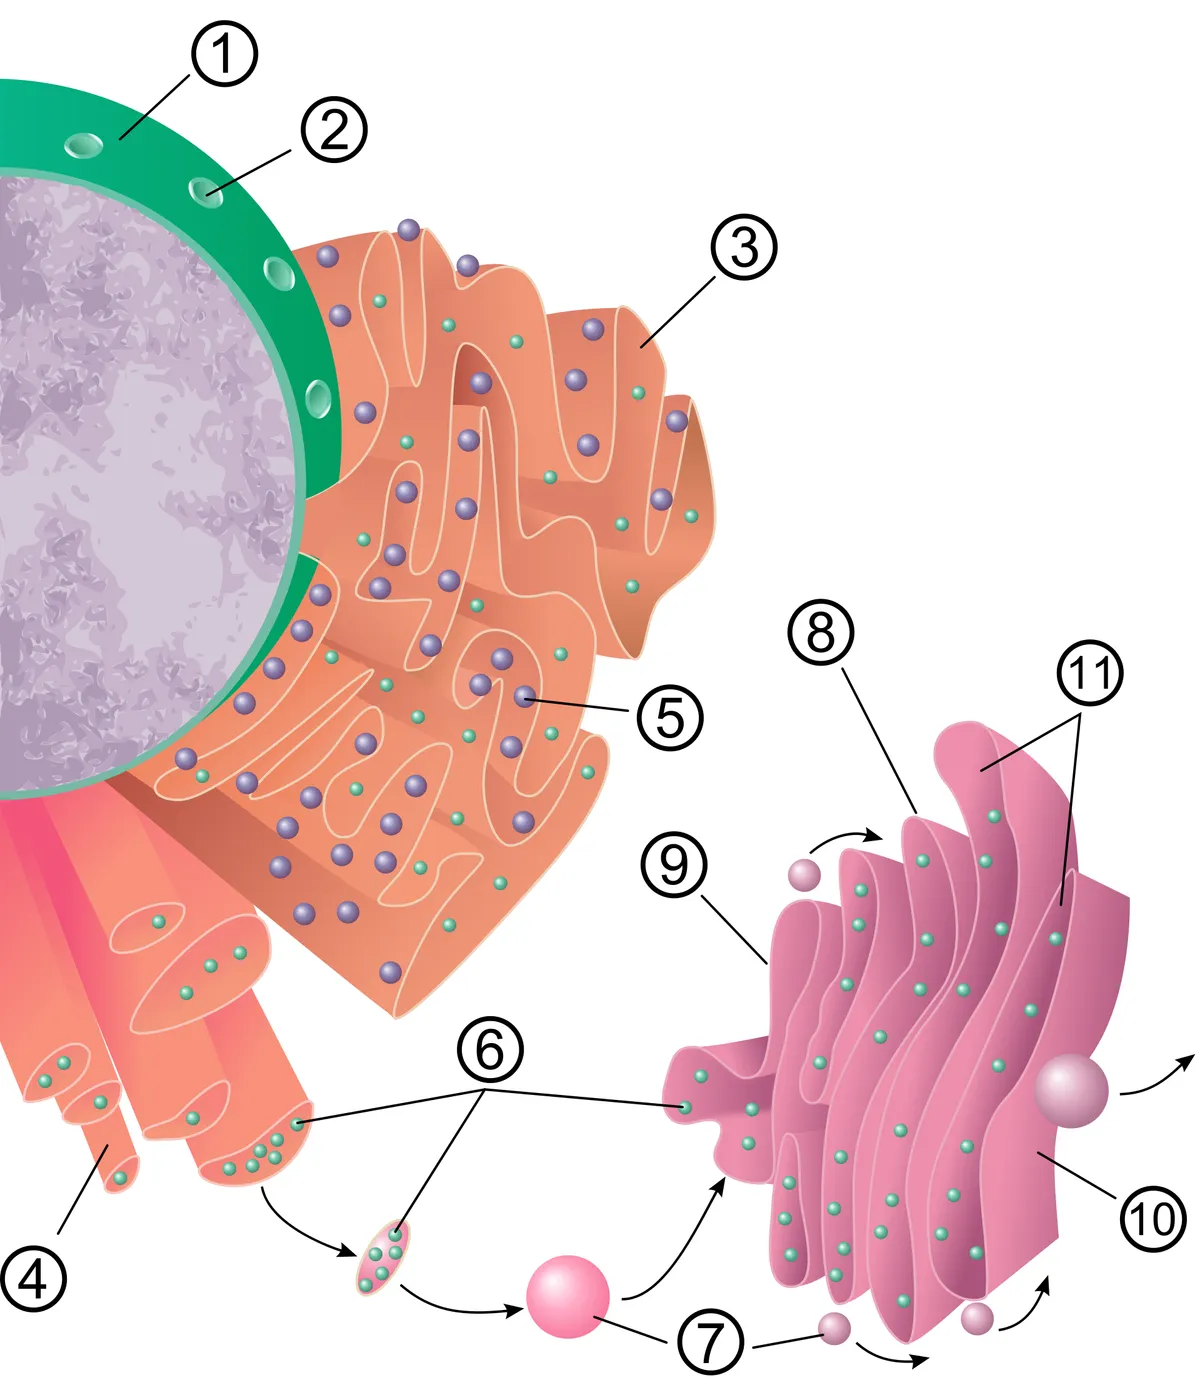
Lưới nội chất là mạng màng liên tục lớn nhất tế bào, gồm các tấm dẹt và ống, nối liền với màng nhân. Lưới nội chất hạt là các bể dẹt xếp chồng có ribosome bám mặt ngoài: protein tiết, protein màng và enzyme tiêu thể được dịch mã và đưa thẳng vào lòng bể, tại đây chúng được gấp nếp nhờ chaperone, tạo cầu disulfide và gắn chuỗi đường N-glycan đầu tiên. Protein gấp sai bị giữ lại và phân hủy; khi tích tụ quá nhiều, tế bào kích hoạt đáp ứng protein không gấp nếp (UPR).[16][17]
Lưới nội chất trơn là mạng ống không có ribosome: tổng hợp phospholipid và cholesterol, hormone steroid (vỏ thượng thận, tinh hoàn), khử độc thuốc nhờ cytochrome P450 (tế bào gan) và dự trữ Ca²⁺; ở tế bào cơ nó biệt hóa thành lưới cơ tương. Lưới nội chất tiếp xúc trực tiếp với ty thể, màng sinh chất, nội thể và giọt mỡ tại các điểm tiếp xúc màng cách nhau 10–30 nm, nơi lipid và Ca²⁺ được chuyển giao mà không cần túi.[18][19][20]
Protein rời lưới nội chất trong túi có vỏ COPII để tới bộ Golgi, một chồng 4–8 bể dẹt có cực: mặt cis nhận hàng, mặt trans gửi đi. Đi qua các bể, chuỗi đường được cắt tỉa và gắn thêm theo thứ tự nhờ các glycosyltransferase xếp lớp từ cis đến trans; enzyme tiêu thể được đánh dấu mannose-6-phosphate. Tại mạng lưới trans-Golgi, hàng hóa được phân loại vào ba đường: túi đến tiêu thể, túi tiết liên tục ra màng, và hạt chế tiết dự trữ chờ tín hiệu (như insulin, enzyme tụy).[21][22][23][24]
Ty thể
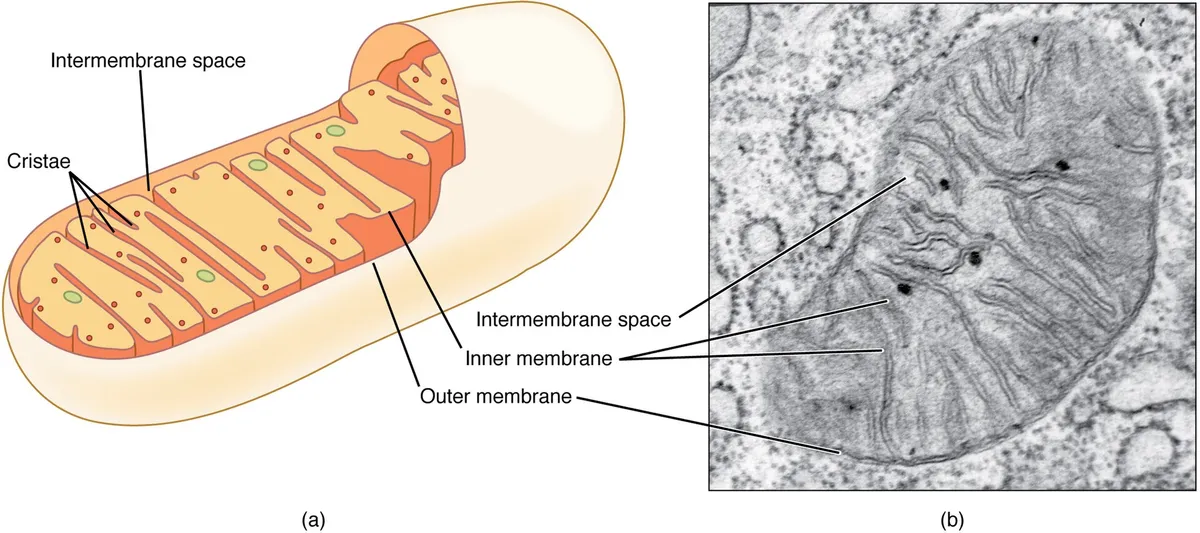
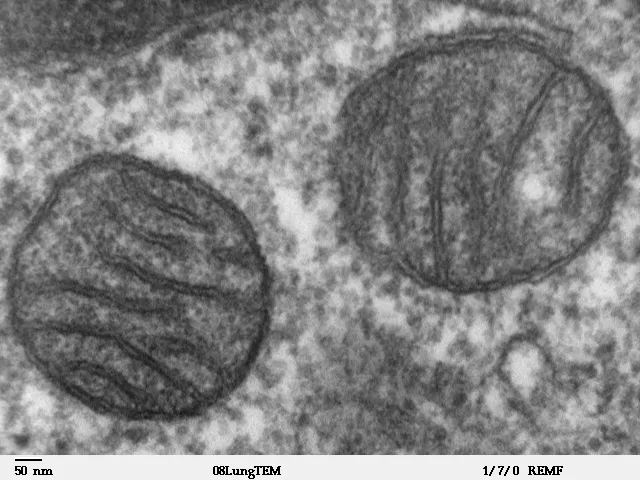
Ty thể có hai màng: màng ngoài nhẵn, thấm được các phân tử nhỏ, và màng trong gấp thành mào, chứa chuỗi vận chuyển điện tử và ATP synthase. Gradient proton tạo ra qua màng trong vận hành ATP synthase, tạo phần lớn ATP của tế bào; chất nền bên trong chứa enzyme chu trình Krebs, β-oxy hóa acid béo, DNA ty thể vòng (37 gen) và ribosome riêng. Số ty thể tỉ lệ với nhu cầu năng lượng: chúng chiếm khoảng một phần ba thể tích tế bào cơ tim.[25][26][27]
Ty thể không phải những hạt riêng lẻ cố định mà là một mạng động liên tục hòa nhập và phân chia. Hòa nhập (mitofusin ở màng ngoài, OPA1 ở màng trong) cho phép chia sẻ protein và DNA; phân chia nhờ dynamin DRP1 thắt lại tại các điểm tiếp xúc với lưới nội chất, tách phần hỏng ra để bị loại bỏ bằng tự thực ty thể (mitophagy). Gần 99% protein ty thể do gen trong nhân mã hóa và được đưa vào qua các phức hợp nhập TOM, TIM.[28][29][30][31]
Ngoài năng lượng, ty thể điều hòa Ca²⁺, tạo gốc oxy hóa dùng làm tín hiệu và quyết định chết tế bào theo chương trình: khi màng ngoài thủng, cytochrome c thoát ra hoạt hóa caspase. DNA ty thể thoát ra bào tương lại bị nhận diện như vật lạ và gây viêm. Rối loạn hình thái và động học ty thể gặp trong bệnh thoái hóa thần kinh, suy tim và bệnh thận.[32][33][34]
Tiêu thể, tự thực và peroxisome
Tiêu thể là túi có một màng, lòng acid (pH khoảng 4,5–5 nhờ bơm proton V-ATPase) chứa hơn 50 enzyme thủy phân. Vật liệu đến tiêu thể qua ba đường: nhập bào (thụ thể và chất lỏng từ màng qua nội thể sớm, nội thể muộn), thực bào (vi khuẩn, tế bào chết ở đại thực bào) và tự thực. Sự trưởng thành từ nội thể đến tiêu thể được các GTPase Rab5 rồi Rab7 điều khiển. Thiếu một enzyme tiêu thể gây bệnh tích lũy, như Gaucher hay Tay-Sachs.[35][36]
Trong tự thực, một màng kép bao lấy một phần bào tương, protein kết tụ hay bào quan hỏng thành thể tự thực, rồi hòa với tiêu thể để tiêu hóa; sản phẩm được tái sử dụng. Đây là cơ chế sống còn khi đói và là hệ kiểm soát chất lượng chính của neuron, tế bào không phân chia nên không thể “pha loãng” rác qua phân bào; suy giảm tự thực – tiêu thể góp phần vào bệnh Alzheimer, Parkinson và Huntington.[37][38][39]
Peroxisome là túi một màng nhỏ (0,2–1 µm) chứa oxidase tạo H₂O₂ và catalase phân hủy nó. Chúng β-oxy hóa acid béo chuỗi rất dài, α-oxy hóa acid phytanic, tổng hợp plasmalogen (lipid quan trọng của myelin) và acid mật. Protein peroxisome được nhập từ bào tương nhờ các peroxin (gen PEX); hỏng các gen này gây bệnh hình thành peroxisome như hội chứng Zellweger.[40][41][42]
Bộ khung tế bào
Ba hệ sợi tạo nên bộ khung. Vi sợi actin (7 nm) dày nhất ở vỏ ngay dưới màng, tạo vi nhung mao, giả túc và vòng co khi phân chia, và cùng myosin tạo lực co. Vi ống (25 nm) là ống rỗng bằng tubulin α/β, mọc từ trung thể với đầu dương hướng ra ngoài; chúng liên tục mọc dài và sụp đổ (“bất ổn động học”), làm đường ray cho kinesin (đi ra ngoại vi) và dynein (đi vào trung tâm), và tạo thoi phân bào.[43]
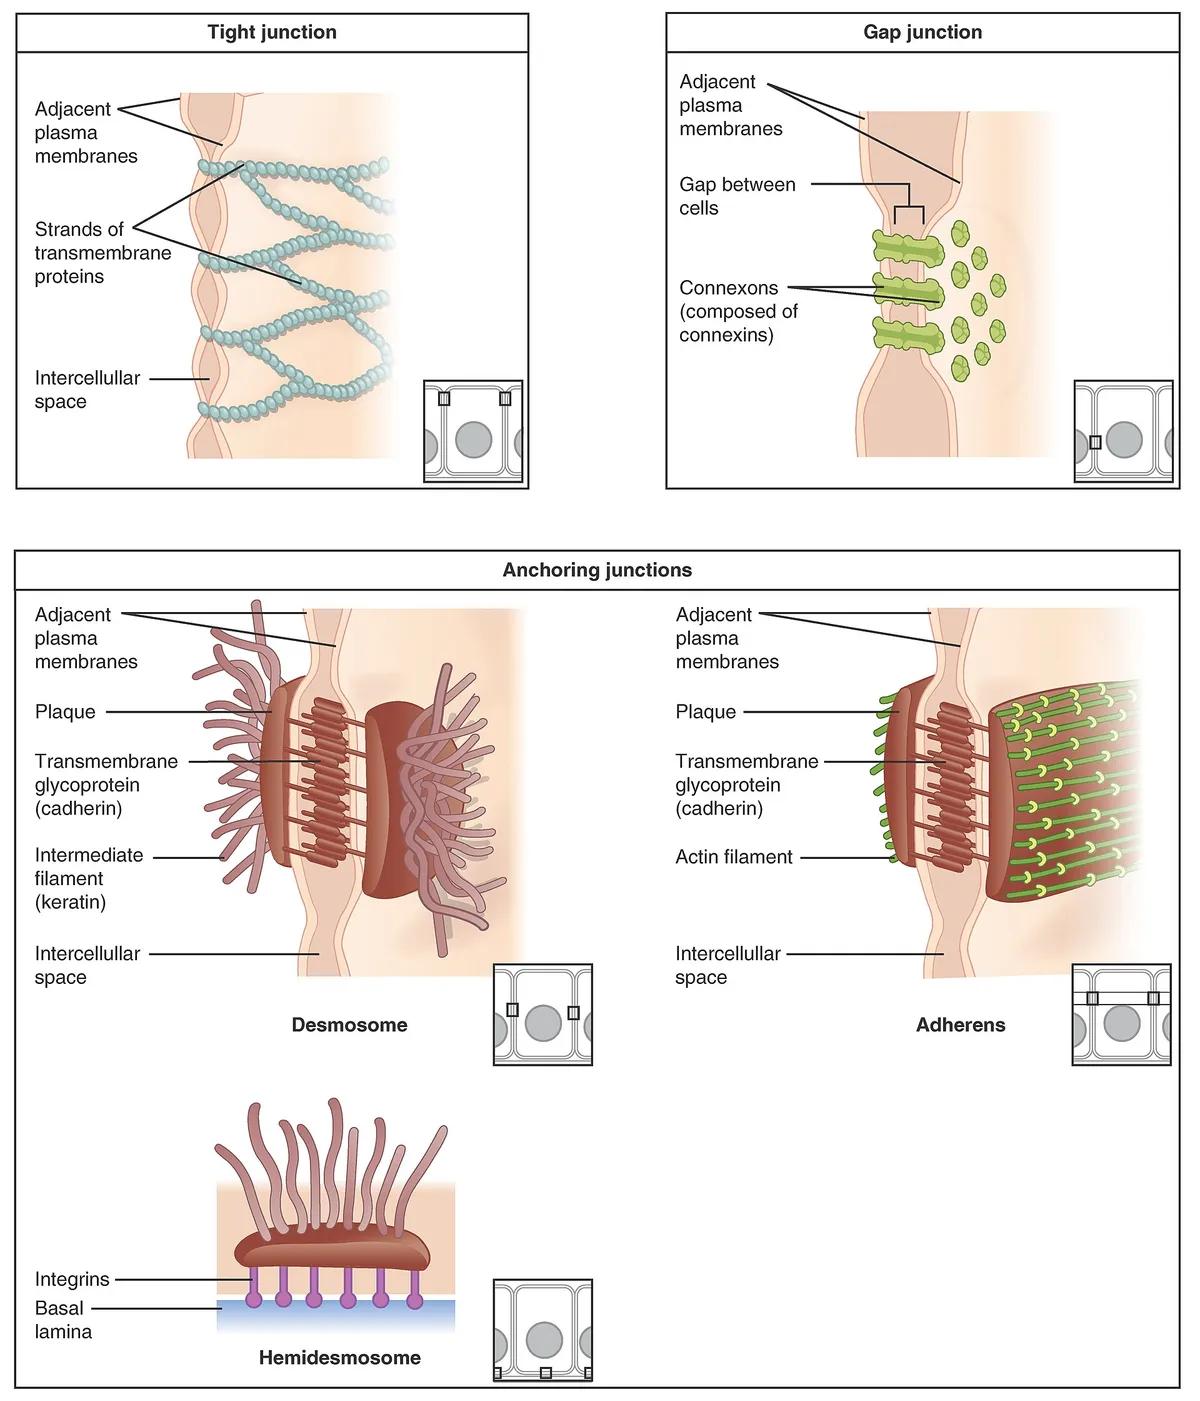
Sợi trung gian (10 nm) bền về cơ học và đặc trưng cho từng loại tế bào: keratin ở biểu mô, vimentin ở tế bào trung mô, desmin ở cơ, GFAP ở tế bào hình sao, neurofilament ở neuron, lamin trong nhân. Chúng nối với thể liên kết và thể bán liên kết để phân tán lực kéo khắp mô; đột biến keratin làm da phồng rộp chỉ sau cọ xát nhẹ. Vì đặc trưng tế bào, chúng là dấu ấn chẩn đoán u, và neurofilament trong máu là chỉ dấu tổn thương sợi trục.[44][45][46]
Trung thể gồm hai trung tử vuông góc, mỗi trung tử là ống trụ đường kính khoảng 250 nm, dài 500 nm, thành gồm chín bộ ba vi ống, quanh là chất quanh trung tử nơi vi ống được tạo mầm. Trung tử cũng là thể đáy của lông chuyển: sợi trục lông có cấu trúc 9 + 2 với dynein làm lông đập. Tế bào đa lông chuyển của đường hô hấp mang hàng trăm lông đập đồng bộ để đẩy chất nhầy; rối loạn vận động lông gây viêm phế quản, viêm xoang tái phát và vô sinh.[47][48][49]
Chu kỳ tế bào và phân bào
Chu kỳ tế bào gồm kỳ trung gian (G1, S nhân đôi DNA, G2) và pha M. Các điểm kiểm soát do phức hợp cyclin – CDK điều khiển chỉ cho tế bào đi tiếp khi DNA nguyên vẹn và đã sao chép xong; yếu tố phiên mã MYC thúc tế bào vào chu kỳ và bị hoạt hóa quá mức trong nhiều ung thư. Tế bào biệt hóa cao như neuron rời chu kỳ vào G0 vĩnh viễn; tế bào già (lão hóa tế bào) ngừng chia vĩnh viễn nhưng vẫn tiết chất gây viêm.[50][51]
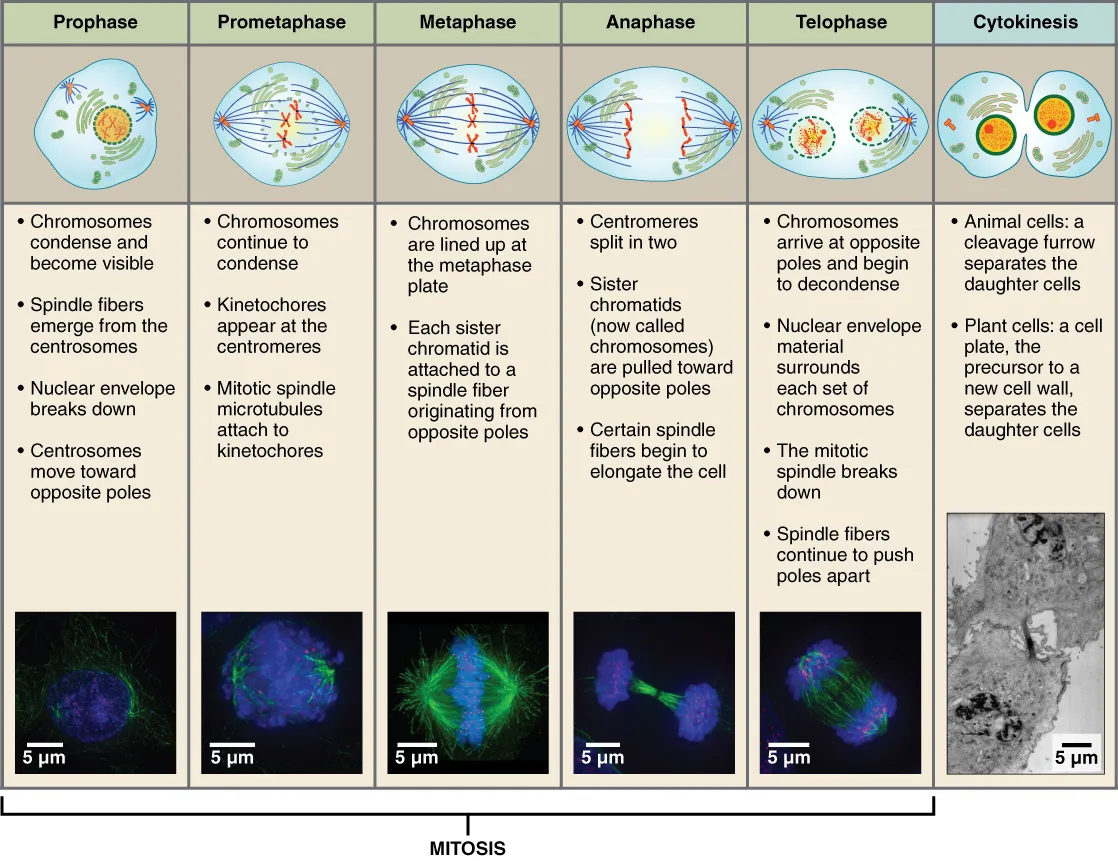
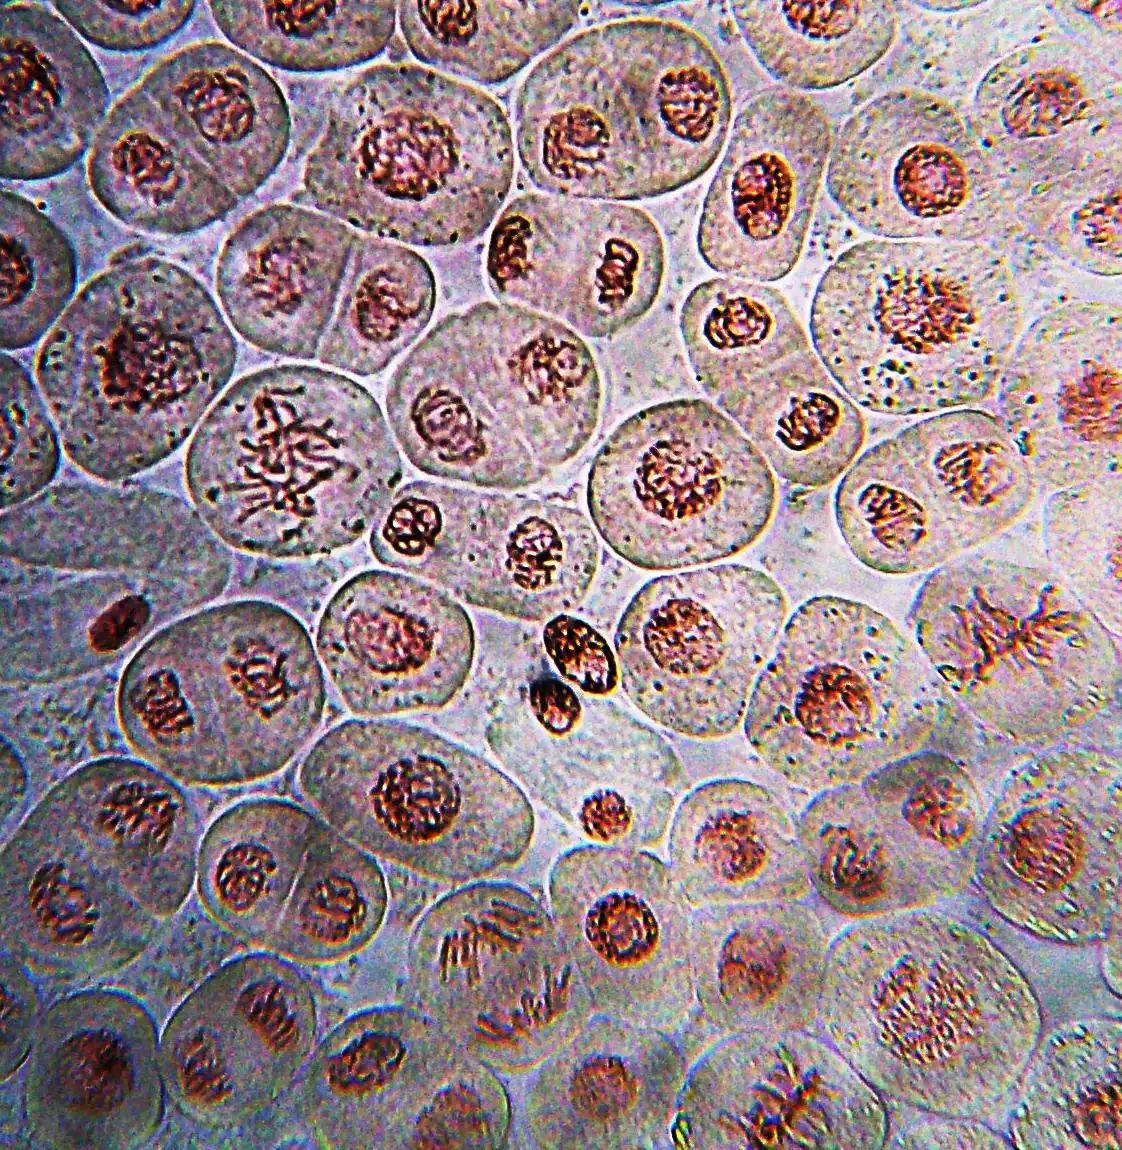
Trong nguyên phân, nhiễm sắc thể đóng xoắn, màng nhân tan (tiền kỳ, tiền trung kỳ), thoi vô sắc bắt vào tâm động qua kinetochore – phức hợp protein trên tâm động gắn với đầu vi ống. Điểm kiểm soát thoi giữ tế bào ở trung kỳ đến khi mọi nhiễm sắc thể được gắn đúng hai cực; sau đó cohesin bị cắt, các nhiễm sắc tử tách về hai cực (hậu kỳ), màng nhân tái lập (mạt kỳ) và vòng actin – myosin thắt đôi bào tương. Sai sót phân ly tạo lệch bội, nguyên nhân hàng đầu của sẩy thai và đặc điểm của nhiều khối u.[52][53][54][55]
Toàn văn tham khảo (StatPearls)
Nguyên văn tiếng Anh các chương StatPearls về chủ đề này, giữ đúng bản gốc. Giấy phép CC BY-NC-ND 4.0 chỉ cho phép sao chép nguyên văn, không cho dịch hay rút gọn, nên phần tiếng Việt ở trên là bài viết diễn giải riêng có trích dẫn.
Anatomy, Back, Nucleus PulposusNedresky D, Reddy V, Singh G · StatPearls 2023 · NBK535373 · 8k ký tự
Đang tải…
Nedresky D, Reddy V, Singh G. Anatomy, Back, Nucleus Pulposus. StatPearls [Internet]. Treasure Island (FL): StatPearls Publishing; 2023. NBK535373 · PMID 30570994 · CC BY-NC-ND 4.0. Trích nguyên văn, không chỉnh sửa.
Histology, Rough Endoplasmic ReticulumSanvictores T, Davis DD · StatPearls 2023 · NBK563126 · 7k ký tự
Đang tải…
Sanvictores T, Davis DD. Histology, Rough Endoplasmic Reticulum. StatPearls [Internet]. Treasure Island (FL): StatPearls Publishing; 2023. NBK563126 · PMID 33085273 · CC BY-NC-ND 4.0. Trích nguyên văn, không chỉnh sửa.
Các cơ quan trong hệ
Tài liệu tham khảo
Nguồn tham khảo cho các số liệu và mô tả trên trang, tra cứu trên PubMed (Thư viện Y khoa Quốc gia Hoa Kỳ).
- [1]Essay on Biomembrane StructureGerle C, The Journal of membrane biology 2019PMID 30877332
- [2]Lipid Rafts: Controversies Resolved, Mysteries RemainLevental I et al., Trends in cell biology 2020PMID 32302547
- [3]Lipid rafts as a membrane-organizing principleLingwood D et al., Science 2010PMID 20044567
- [4]CaveolaeParton RG et al., Current biology 2018PMID 29689223
- [5]The endothelial glycocalyx: composition, functions, and visualizationReitsma S et al., Pflugers Archiv 2007PMID 17256154
- [6]The glycocalyx: a novel diagnostic and therapeutic target in sepsisUchimido R et al., Critical care 2019PMID 30654825
- [7]Lamina-associated domains: Tethers and loosenersManzo SG et al., Current opinion in cell biology 2022PMID 35189475
- [8]Shared mechanisms in physiological and pathological nucleoplasmic reticulum formationDrozdz MM et al., Nucleus 2017PMID 27797635
- [9]The Structure of the Nuclear Pore Complex (An Update)Lin DH et al., Annual review of biochemistry 2019PMID 30883195
- [10]Structure, function and assembly of nuclear pore complexesPetrovic S et al., Nature reviews. Molecular cell biology 2026PMID 40926106
- [11]Aggregation, Phase Separation and Spatial Morphologies of the Assemblies of FG NucleoporinsZilman A, Journal of molecular biology 2018PMID 30017917
- [12]Chromosome territories and the global regulation of the genomeFritz AJ et al., Genes, chromosomes & cancer 2019PMID 30664301
- [13]Decoding the organization, dynamics, and function of the 4D genomeAboelnour E et al., Developmental cell 2021PMID 33984271
- [14]The nucleolusPederson T, Cold Spring Harbor perspectives in biology 2011PMID 21106648
- [15]Eukaryotic Ribosome AssemblyVanden Broeck A et al., Annual review of biochemistry 2024PMID 38768392
- [16]Histology, Rough Endoplasmic ReticulumSanvictores T et al., StatPearls 2023PMID 33085273
- [17]The endoplasmic reticulum: structure, function and response to cellular signalingSchwarz DS et al., Cellular and molecular life sciences 2016PMID 26433683
- [18]Structure and function of ER membrane contact sites with other organellesPhillips MJ et al., Nature reviews. Molecular cell biology 2016PMID 26627931
- [19]Endoplasmic reticulum-mitochondria contacts: function of the junctionRowland AA et al., Nature reviews. Molecular cell biology 2012PMID 22992592
- [20]Zooming into lipid droplet biology through the lens of electron microscopyDudka W et al., FEBS letters 2024PMID 38726814
- [21]Making COPII coatsKirchhausen T, Cell 2007PMID 17604713
- [22]The Golgi complex: a hub of the secretory pathwayPark K et al., BMB reports 2021PMID 33612152
- [23]Golgi glycosylationStanley P, Cold Spring Harbor perspectives in biology 2011PMID 21441588
- [24]Mechanistic insights into cargo sorting and export from the Golgi apparatusWatson ET et al., Nature reviews. Molecular cell biology 2025PMID 41214333
- [25]Mitochondrial proteins: from biogenesis to functional networksPfanner N et al., Nature reviews. Molecular cell biology 2019PMID 30626975
- [26]Structure and Function of the Mitochondrial RibosomeGreber BJ et al., Annual review of biochemistry 2016PMID 27023846
- [27]Kinetic Mathematical Modeling of Oxidative Phosphorylation in Cardiomyocyte MitochondriaTseng WW et al., Cells 2022PMID 36552784
- [28]Molecular mechanisms of mitochondrial dynamicsTábara LC et al., Nature reviews. Molecular cell biology 2025PMID 39420231
- [29]The cell biology of mitochondrial membrane dynamicsGiacomello M et al., Nature reviews. Molecular cell biology 2020PMID 32071438
- [30]Mitochondrial Machineries for Protein Import and AssemblyWiedemann N et al., Annual review of biochemistry 2017PMID 28301740
- [31]Mechanisms of mitophagyYoule RJ et al., Nature reviews. Molecular cell biology 2011PMID 21179058
- [32]Mitochondria and cell death-associated inflammationVringer E et al., Cell death and differentiation 2023PMID 36447047
- [33]Mitochondria in disease: changes in shapes and dynamicsJenkins BC et al., Trends in biochemical sciences 2024PMID 38402097
- [34]Mitochondrial dysfunction and the AKI-to-CKD transitionJiang M et al., American journal of physiology. Renal physiology 2020PMID 33073587
- [35]Rab GTPase Function in Endosome and Lysosome BiogenesisLangemeyer L et al., Trends in cell biology 2018PMID 30025982
- [36]Lysosomal quality control ReviewHenn D et al., Autophagy 2025PMID 39968899
- [37]Autophagy pathway: Cellular and molecular mechanismsYu L et al., Autophagy 2018PMID 28933638
- [38]Mechanisms of autophagy-lysosome dysfunction in neurodegenerative diseasesNixon RA et al., Nature reviews. Molecular cell biology 2024PMID 39107446
- [39]Autophagy genes in biology and diseaseYamamoto H et al., Nature reviews. Genetics 2023PMID 36635405
- [40]Peroxisome: Metabolic Functions and BiogenesisOkumoto K et al., Advances in experimental medicine and biology 2020PMID 33417203
- [41]Peroxisomes: a nexus for lipid metabolism and cellular signalingLodhi IJ et al., Cell metabolism 2014PMID 24508507
- [42]Alpha-oxidationJansen GA et al., Biochimica et biophysica acta 2006PMID 16934890
- [43]Microtubules and Microtubule-Associated ProteinsGoodson HV et al., Cold Spring Harbor perspectives in biology 2018PMID 29858272
- [44]Plasticity of cytoplasmic intermediate filament architecture determines cellular functionsSchwarz N et al., Current opinion in cell biology 2023PMID 37918274
- [45]GFAP at 50Messing A et al., ASN neuro 2020PMID 32811163
- [46]Neurofilaments as biomarkers in neurological disorders - towards clinical applicationKhalil M et al., Nature reviews. Neurology 2024PMID 38609644
- [47]Centriole structureWiney M et al., Philosophical transactions of the Royal Society of London. Series B, Biological sciences 2014PMID 25047611
- [48]Multiciliated cellsBrooks ER et al., Current biology 2014PMID 25291643
- [49]Towards an atomic model of a beating ciliary axonemeGrossman-Haham I, Current opinion in structural biology 2023PMID 36586349
- [50]Myc and cell cycle controlBretones G et al., Biochimica et biophysica acta 2015PMID 24704206
- [51]A guide to assessing cellular senescence in vitro and in vivoGonzález-Gualda E et al., The FEBS journal 2021PMID 32961620
- [52]PrometaphaseFerreira LT et al., Seminars in cell & developmental biology 2021PMID 34127384
- [53]The kinetochoreCheeseman IM, Cold Spring Harbor perspectives in biology 2014PMID 24984773
- [54]Mitotic genome foldingHirano T, The Journal of cell biology 2025PMID 40492990
- [55]Human aneuploidy: mechanisms and new insights into an age-old problemNagaoka SI et al., Nature reviews. Genetics 2012PMID 22705668