細胞と細胞小器官
モデル
ポインタを合わせるかタップすると名前が、クリックすると説明が表示される。凡例の名前をクリックするとその構造へ移動する。組織学的な比率に基づきアルゴリズムで作成した模型で、色は図譜の慣例に従う。
説明
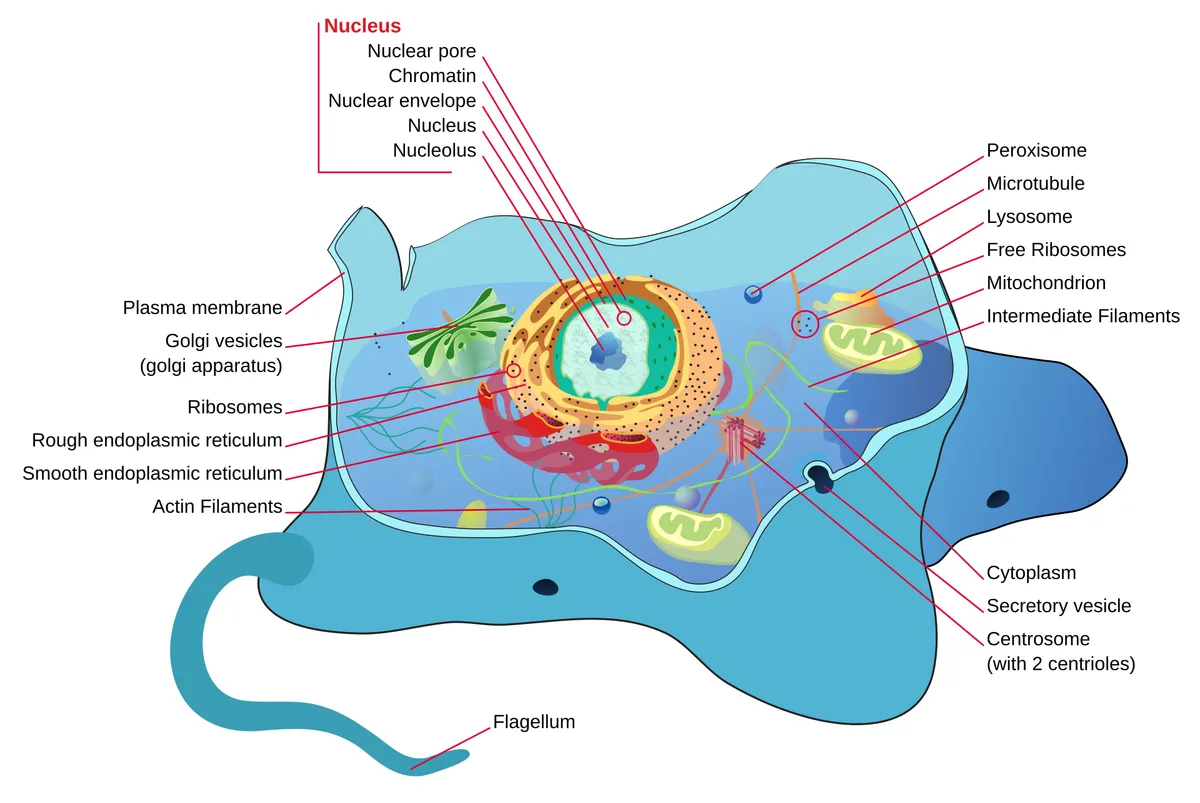
真核細胞は細胞質と核を包む細胞膜からなる。細胞質には膜をもつ細胞小器官(小胞体、ゴルジ装置、ミトコンドリア、リソソーム、ペルオキシソーム)、膜をもたない細胞小器官(リボソーム、中心体)と細胞骨格がある。各細胞小器官は特化した区画であり、協力して合成、輸送、エネルギー産生、分解、分裂を行う。
細胞膜
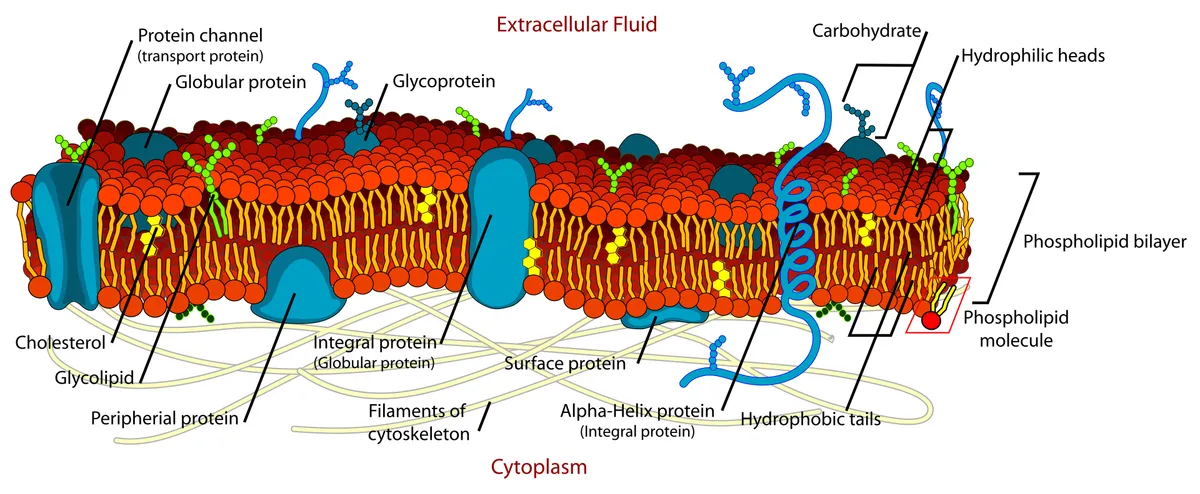
細胞膜は厚さ約7〜8 nmのリン脂質二重層で、疎水性の尾部が内側を向き、コレステロールとタンパク質が散在する。流動モザイクモデルでは、脂質と多くのタンパク質が膜面内を横方向に拡散する。膜貫通タンパク質はチャネル、ポンプ、輸送体、受容体として働き、表在性タンパク質は両側の面に結合する。2つの層は異なっており、ホスファチジルセリンは内層にあり、これが外側に露出すると死にゆく細胞を除去するようマクロファージへの合図となる。[1]
膜は一様ではない。コレステロールとスフィンゴ脂質は短命なナノドメイン(脂質ラフト)に集まり、特定の受容体や信号分子を濃縮する傾向がある。このドメインは小さく一過性で直接観察しにくいため、長く議論の的だった。カベオラはカベオリンとキャビンタンパク質がつくる50〜100 nmのフラスコ状のくぼみで、内皮、脂肪細胞、平滑筋に多い。膜が伸ばされると平らになり、膜の断裂を防ぐ予備として働く。[2][3][4]
外表面は糖衣(グリコカリックス)、すなわち糖タンパク質、糖脂質、プロテオグリカンのオリゴ糖鎖に覆われている。糖衣は血液型を決め、細胞の認識と接着を仲介する。血管内皮では厚さ数百ナノメートルに達し、血流のずり応力を感知し、血小板や白血球が壁に付着しないようにし、敗血症では急速に剥がれ落ちる。[5][6]
核
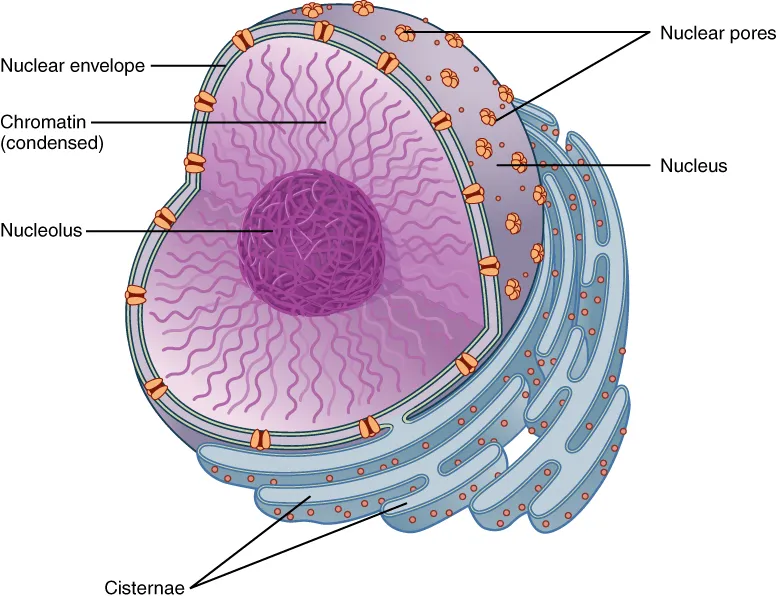
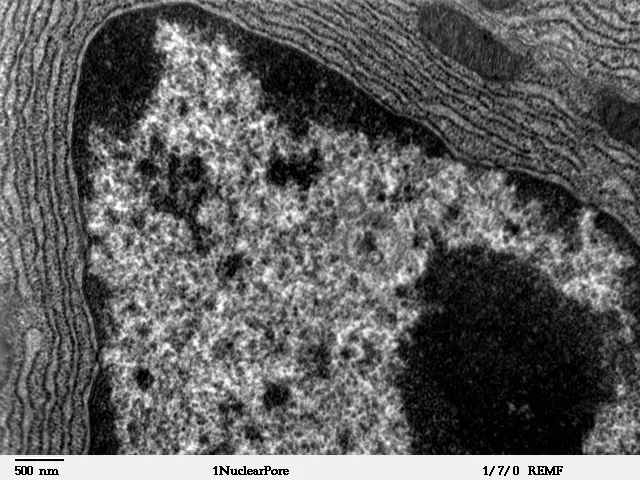
核(直径5〜10 µm)は二重の核膜に包まれる。外膜は粗面小胞体と連続してリボソームも付着し、2枚の膜の間の腔は小胞体内腔と連続する。内面はラミンA、B、Cからなる核ラミナで裏打ちされ、核の形を保つとともにクロマチンを係留する。ラミンAの変異はエメリー・ドレイフス型筋ジストロフィーやハッチンソン・ギルフォード早老症などのラミノパチーを引き起こす。[7][8]
核と細胞質の間のすべての輸送は核膜孔を通る。核膜孔複合体は約30種のヌクレオポリンが約1,000コピー、8回対称に集まった約110 MDaの巨大複合体である。通路にはフェニルアラニン・グリシンに富むタンパク質鎖の網目があり、小分子は自由に拡散するが、大きなタンパク質やメッセンジャーRNAはRan-GTP勾配で駆動される輸送受容体(インポーチン、エクスポーチン)に運ばれなければならない。1つの核には数千の核膜孔がある。[9][10][11]
約2 mのDNAはヌクレオソームに巻きついたのち多段階に折りたたまれる。クロマチンループ、トポロジカル関連ドメイン(TAD)、活性・不活性コンパートメント、そして最終的に染色体ごとの染色体テリトリーである。密で転写が抑えられたヘテロクロマチンは核ラミナや核小体の周囲に、開いた活性型のユークロマチンは核の内部に位置する傾向がある。核小体はリボソームRNA遺伝子群の周囲に膜なしで形成され、そこでrRNAが転写され、リボソームサブユニットが組み立てられて核膜孔から輸送される。[12][13][14][15]
小胞体、ゴルジ装置と分泌経路
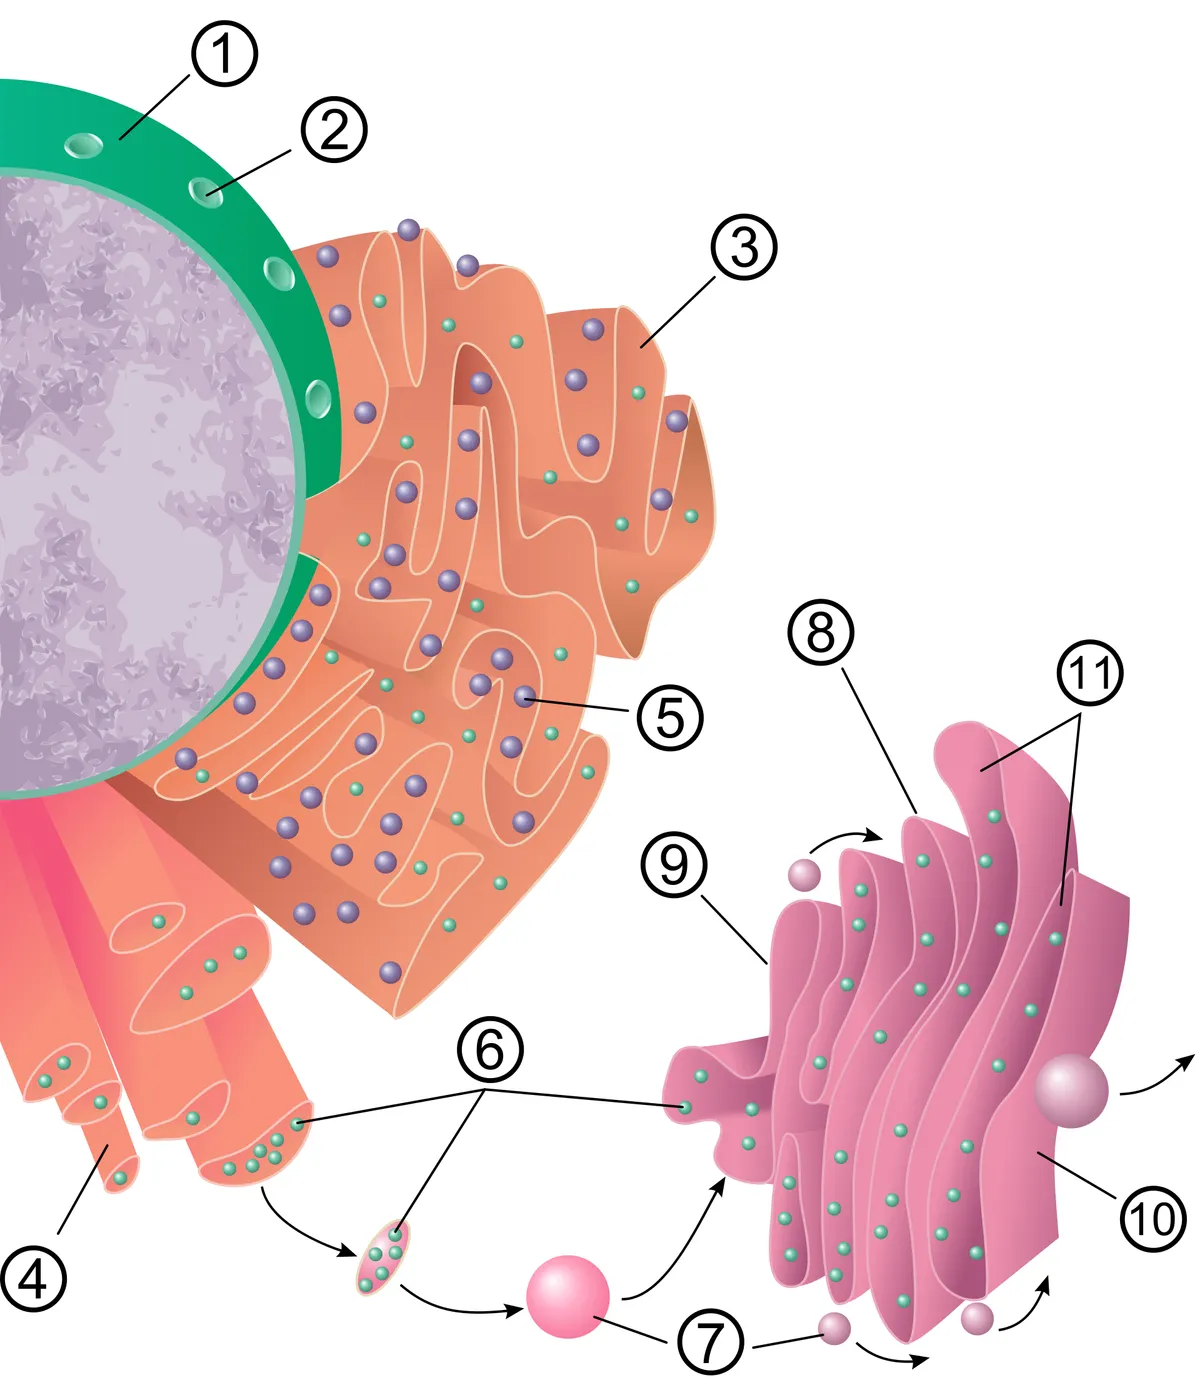
小胞体は細胞内で最大の連続した膜系で、核膜と連続する扁平なシートと細管からなる。粗面小胞体は外面にリボソームが付着した扁平な槽の積み重なりである。分泌タンパク質、膜タンパク質、リソソーム酵素は直接内腔へ翻訳され、そこでシャペロンにより折りたたまれ、ジスルフィド結合が形成され、最初のN結合型糖鎖が付加される。誤って折りたたまれたタンパク質は保持されて分解され、それが蓄積すると細胞は小胞体ストレス応答(UPR)を起こす。[16][17]
滑面小胞体はリボソームをもたない細管網で、リン脂質とコレステロール、ステロイドホルモン(副腎皮質、精巣)を合成し、シトクロムP450酵素で薬物を解毒し(肝細胞)、Ca²⁺を貯蔵する。筋では筋小胞体となる。小胞体はまた、10〜30 nm間隔の膜接触部位でミトコンドリア、細胞膜、エンドソーム、脂肪滴と接し、小胞を介さずに脂質やCa²⁺を受け渡す。[18][19][20]
タンパク質はCOPII被覆小胞に乗って小胞体を出てゴルジ装置へ向かう。ゴルジ装置は4〜8枚の扁平な槽が極性をもって積み重なったもので、シス面が積荷を受け取り、トランス面が送り出す。積荷が通過する間に、シスからトランスへ配列した糖転移酵素が糖鎖を順に刈り込み伸長し、リソソーム酵素にはマンノース6-リン酸の標識が付く。トランスゴルジ網で積荷は3つの経路に仕分けられる。リソソームへの小胞、細胞膜への構成性分泌、そして信号が来るまで貯蔵される調節性分泌顆粒(インスリン、膵酵素)である。[21][22][23][24]
ミトコンドリア
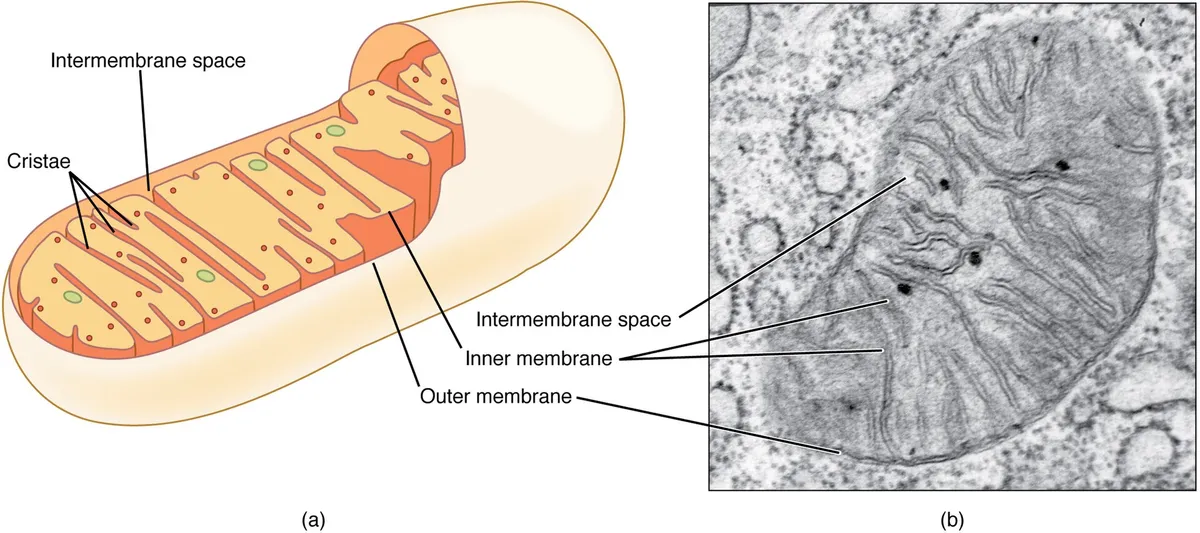
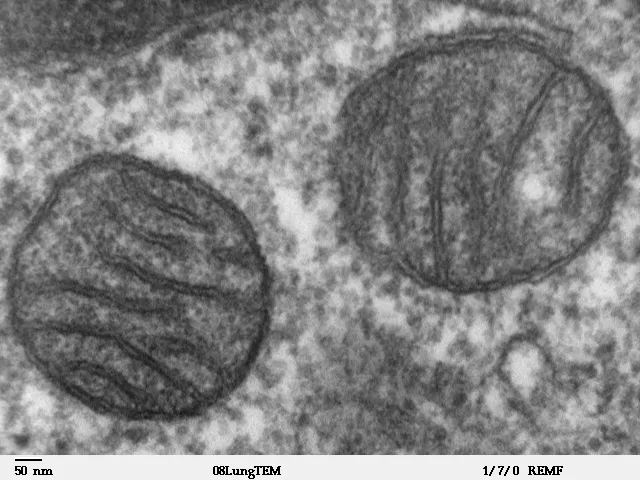
ミトコンドリアは2枚の膜をもつ。小分子を通す平滑な外膜と、電子伝達系とATP合成酵素をもちクリステに折れ込んだ内膜である。内膜を隔てたプロトン勾配がATP合成酵素を駆動し、細胞のATPの大部分を供給する。マトリックスにはクエン酸回路と脂肪酸酸化の酵素、環状のミトコンドリアDNA(37遺伝子)、独自のリボソームがある。その数はエネルギー需要に見合っており、心筋細胞では体積の約3分の1を占める。[25][26][27]
ミトコンドリアは固定された個々の粒ではなく、融合と分裂を絶えず繰り返す動的なネットワークである。融合(外膜のミトフシン、内膜のOPA1)はタンパク質とDNAを共有させ、分裂は小胞体との接触部位でダイナミンDRP1がくびれさせて起こり、損傷部分を切り離してマイトファジーで除去させる。ミトコンドリアタンパク質の約99%は核遺伝子にコードされ、TOM・TIM複合体を通って取り込まれる。[28][29][30][31]
エネルギー以外にも、ミトコンドリアはCa²⁺を緩衝し、信号として使われる活性酸素を産生し、プログラム細胞死を決定する。外膜の透過性が高まるとシトクロムcが漏れ出てカスパーゼを活性化する。細胞質に放出されたミトコンドリアDNAは異物として感知され、炎症を引き起こす。ミトコンドリアの形態と動態の異常は神経変性、心不全、腎疾患にみられる。[32][33][34]
リソソーム、オートファジーとペルオキシソーム
リソソームは一重膜の小胞で、V-ATPaseプロトンポンプが維持する酸性の内腔(pH約4.5〜5)に50種以上の加水分解酵素を含む。物質は3つの経路で到達する。エンドサイトーシス(初期・後期エンドソームを経た細胞膜の受容体と液体)、ファゴサイトーシス(マクロファージにおける細菌や死細胞)、オートファジーである。エンドソームからリソソームへの成熟はGTPアーゼRab5、続いてRab7が統括する。リソソーム酵素が1つ欠けるとゴーシェ病やテイ・サックス病などの蓄積症が生じる。[35][36]
オートファジーでは二重膜が細胞質の一部、タンパク質凝集体、損傷した細胞小器官を包んでオートファゴソームをつくり、これがリソソームと融合して消化され、産物は再利用される。飢餓時に不可欠であり、分裂によって老廃物を薄めることができないニューロンの主要な品質管理機構である。オートファジー・リソソーム経路の破綻はアルツハイマー病、パーキンソン病、ハンチントン病に関与する。[37][38][39]
ペルオキシソームは小さな(0.2〜1 µm)一重膜の小胞で、H₂O₂を生じるオキシダーゼとそれを分解するカタラーゼを含む。極長鎖脂肪酸のβ酸化、フィタン酸のα酸化を行い、プラスマローゲン(ミエリンの重要な脂質)と胆汁酸をつくる。そのタンパク質はペルオキシン(PEX遺伝子)により細胞質から取り込まれ、その欠損はツェルウェガー症候群などのペルオキシソーム形成異常症を起こす。[40][41][42]
細胞骨格
細胞骨格は3種類の線維系からなる。アクチンフィラメント(7 nm)は膜直下の皮質で最も密で、微絨毛、葉状仮足、収縮環をつくり、ミオシンとともに力を生む。微小管(25 nm)はα/βチューブリンからなる中空の管で、中心体からプラス端を外に向けて伸びる。伸長と崩壊を絶えず繰り返し(「動的不安定性」)、キネシン(周辺へ)とダイニン(中心へ)の軌道となり、有糸分裂紡錘体をつくる。[43]
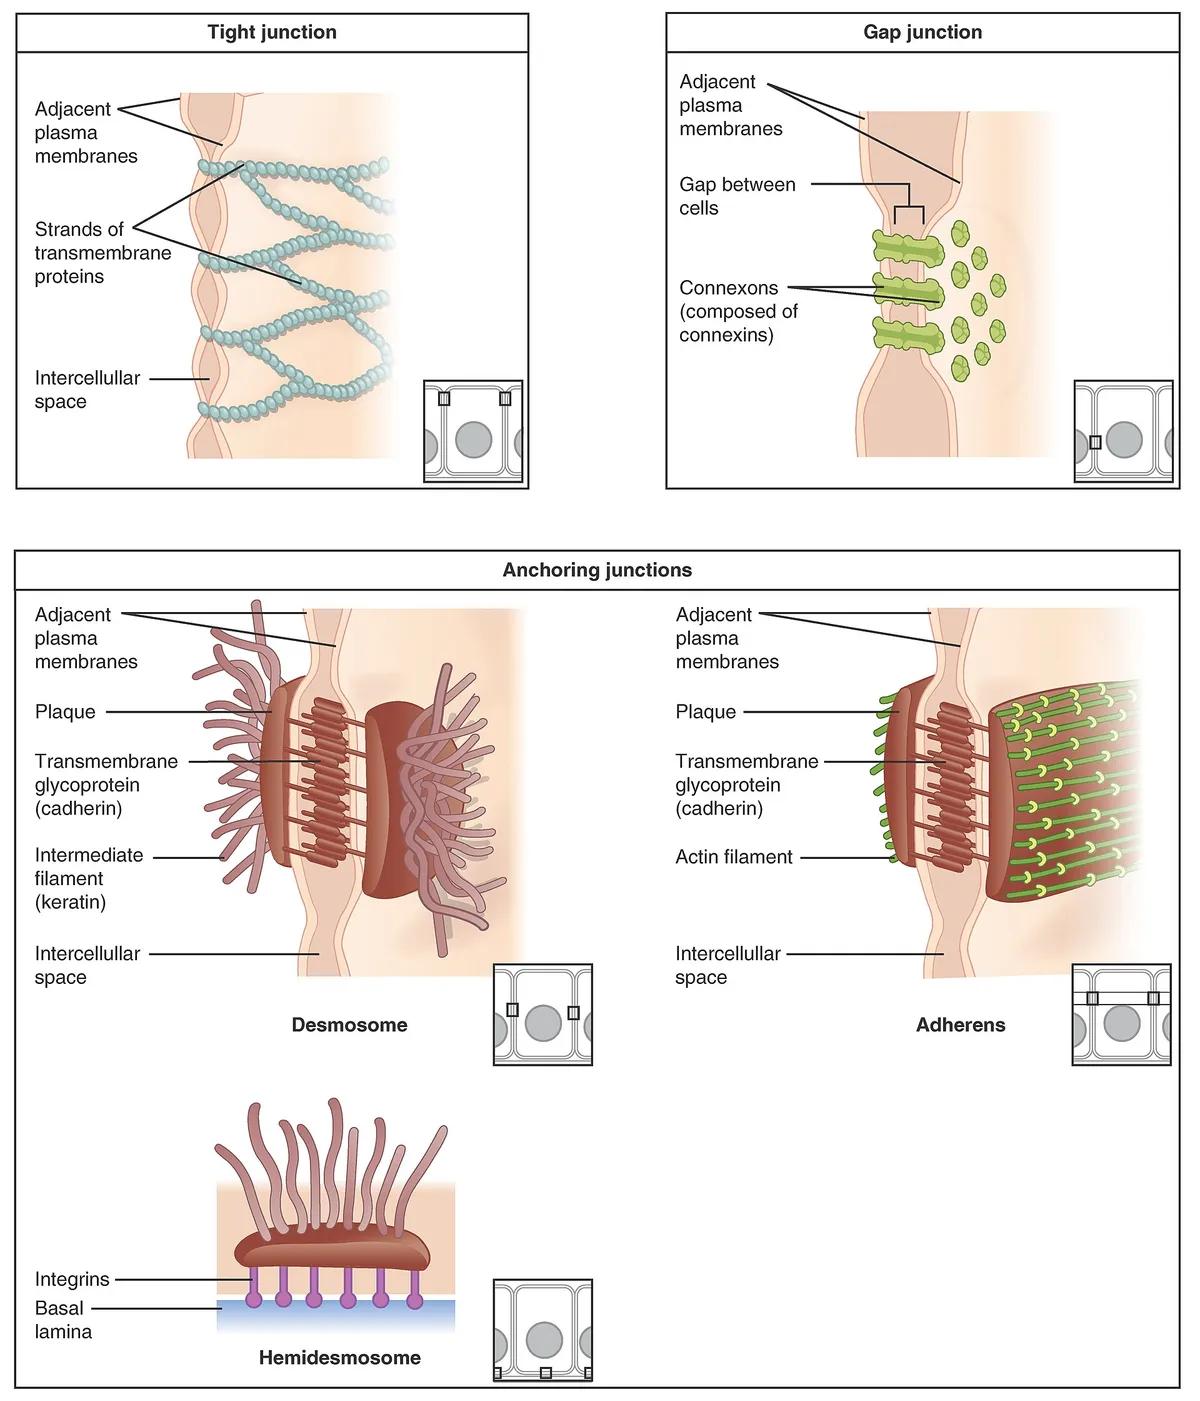
中間径フィラメント(10 nm)は機械的に強靱で細胞種に特異的である。上皮のケラチン、間葉系細胞のビメンチン、筋のデスミン、アストロサイトのGFAP、ニューロンのニューロフィラメント、核のラミンがある。デスモソームとヘミデスモソームに付着して張力を組織全体に分散させ、ケラチン変異では軽い摩擦で皮膚に水疱ができる。細胞種特異的であるため腫瘍マーカーとして用いられ、血中ニューロフィラメントは軸索損傷のバイオマーカーである。[44][45][46]
中心体は直交する2つの中心小体からなる。中心小体は直径約250 nm、長さ500 nmの円筒で、壁は9組の三連微小管からなり、微小管が核形成される中心小体周辺物質に囲まれる。中心小体は線毛の基底小体としても働く。線毛の軸糸は9 + 2構造で、ダイニンが線毛を打たせる。気道の多線毛細胞は同期して打つ数百本の線毛で粘液を運び、線毛運動不全は反復する気管支炎、副鼻腔炎、不妊を起こす。[47][48][49]
細胞周期と細胞分裂
細胞周期は間期(G1、DNAを複製するS期、G2)とM期からなる。サイクリン-CDK複合体が制御するチェックポイントは、DNAが無傷で完全に複製されたときにのみ細胞を先に進ませる。転写因子MYCは細胞を周期に押し込み、多くのがんで過剰に働いている。ニューロンのような高度に分化した細胞は周期を永久に離れてG0に入り、老化細胞は分裂を永久に停止するが炎症性因子を分泌し続ける。[50][51]
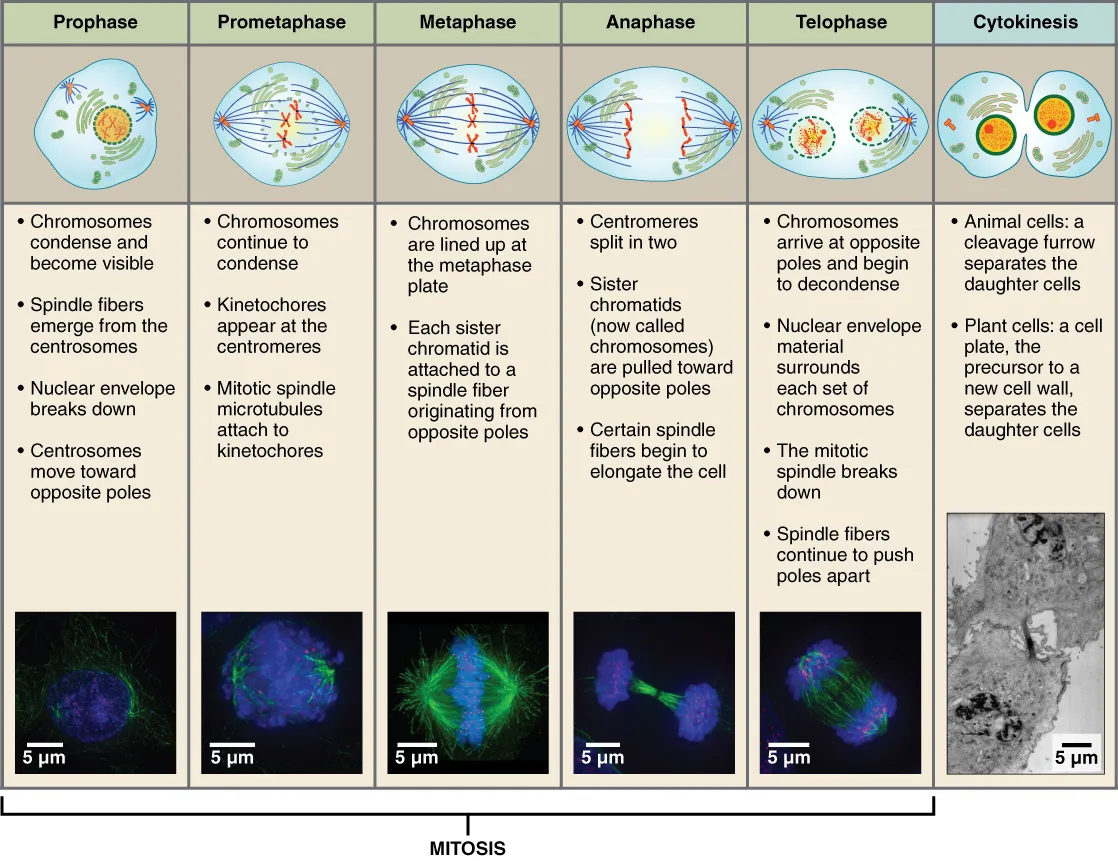
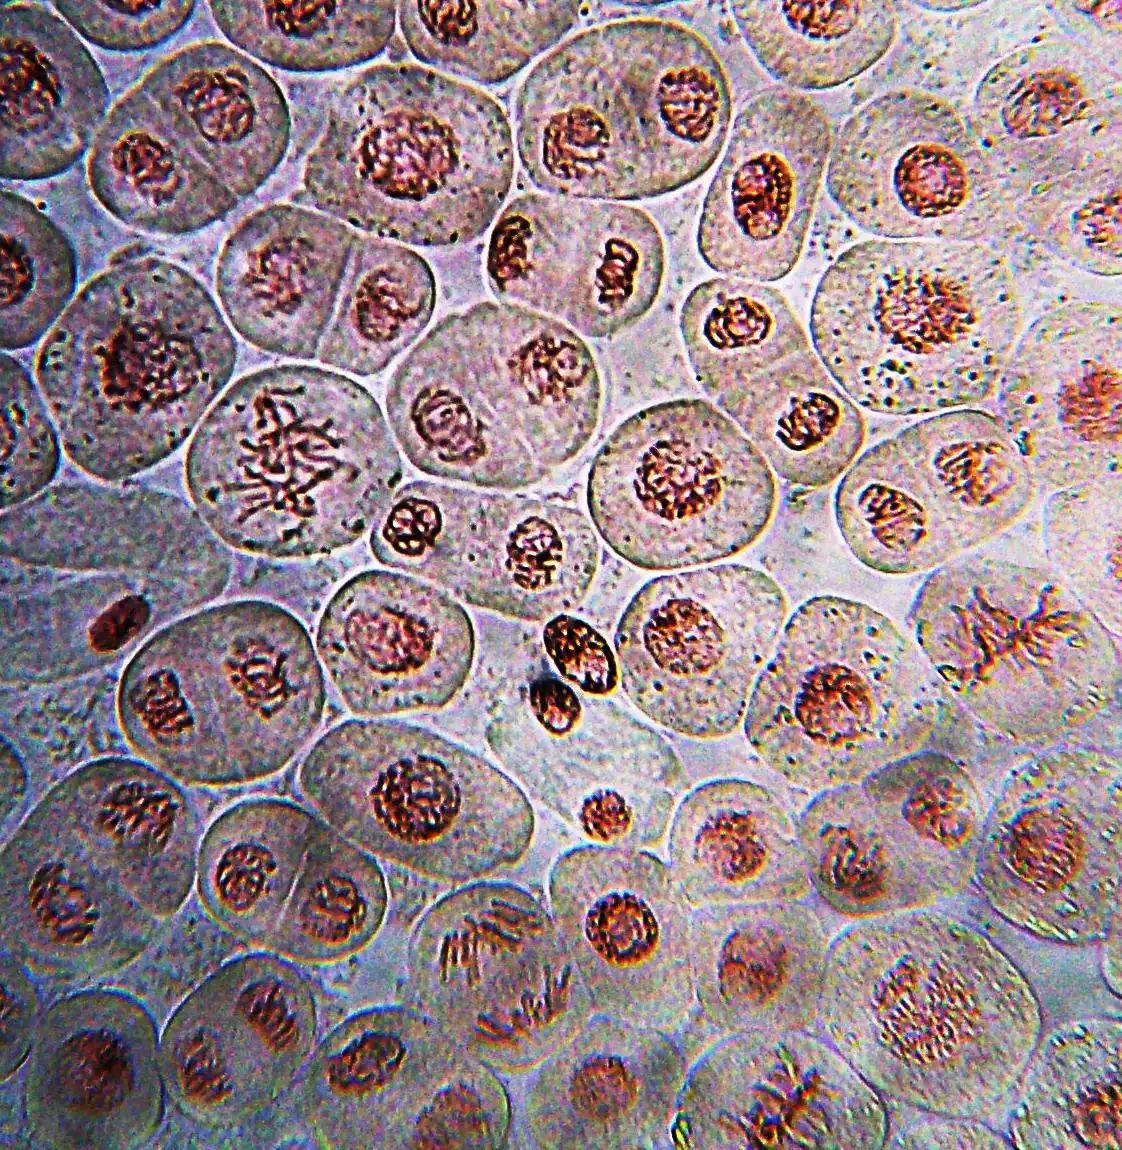
有糸分裂では染色体が凝縮し、核膜が崩壊する(前期、前中期)。紡錘体微小管は、セントロメア上で微小管の末端に結合するタンパク質複合体である動原体(キネトコア)を介してセントロメアを捕らえる。紡錘体チェックポイントは、すべての染色体が両極に結合するまで細胞を中期にとどめる。その後コヒーシンが切断されて姉妹染色分体が両極へ分かれ(後期)、核膜が再形成され(終期)、アクトミオシン環が細胞質を2つにくびり切る。分配の誤りは異数性を生み、流産の主要な原因であり、多くの腫瘍の特徴でもある。[52][53][54][55]
全文を読む(StatPearls)
このテーマに関する StatPearls の章を原文のまま掲載しています。CC BY-NC-ND 4.0 ライセンスは改変しない複製のみを認めるため、翻訳や要約はしていません。
Anatomy, Back, Nucleus PulposusNedresky D, Reddy V, Singh G · StatPearls 2023 · NBK535373 · 8k 文字
読み込み中…
Nedresky D, Reddy V, Singh G. Anatomy, Back, Nucleus Pulposus. StatPearls [Internet]. Treasure Island (FL): StatPearls Publishing; 2023. NBK535373 · PMID 30570994 · CC BY-NC-ND 4.0. 原文のまま、改変なしで掲載。
Histology, Rough Endoplasmic ReticulumSanvictores T, Davis DD · StatPearls 2023 · NBK563126 · 7k 文字
読み込み中…
Sanvictores T, Davis DD. Histology, Rough Endoplasmic Reticulum. StatPearls [Internet]. Treasure Island (FL): StatPearls Publishing; 2023. NBK563126 · PMID 33085273 · CC BY-NC-ND 4.0. 原文のまま、改変なしで掲載。
この器官系の器官
参考文献
このページの数値と記述の出典。PubMed(米国国立医学図書館)に収載されています。
- [1]Essay on Biomembrane StructureGerle C, The Journal of membrane biology 2019PMID 30877332
- [2]Lipid Rafts: Controversies Resolved, Mysteries RemainLevental I et al., Trends in cell biology 2020PMID 32302547
- [3]Lipid rafts as a membrane-organizing principleLingwood D et al., Science 2010PMID 20044567
- [4]CaveolaeParton RG et al., Current biology 2018PMID 29689223
- [5]The endothelial glycocalyx: composition, functions, and visualizationReitsma S et al., Pflugers Archiv 2007PMID 17256154
- [6]The glycocalyx: a novel diagnostic and therapeutic target in sepsisUchimido R et al., Critical care 2019PMID 30654825
- [7]Lamina-associated domains: Tethers and loosenersManzo SG et al., Current opinion in cell biology 2022PMID 35189475
- [8]Shared mechanisms in physiological and pathological nucleoplasmic reticulum formationDrozdz MM et al., Nucleus 2017PMID 27797635
- [9]The Structure of the Nuclear Pore Complex (An Update)Lin DH et al., Annual review of biochemistry 2019PMID 30883195
- [10]Structure, function and assembly of nuclear pore complexesPetrovic S et al., Nature reviews. Molecular cell biology 2026PMID 40926106
- [11]Aggregation, Phase Separation and Spatial Morphologies of the Assemblies of FG NucleoporinsZilman A, Journal of molecular biology 2018PMID 30017917
- [12]Chromosome territories and the global regulation of the genomeFritz AJ et al., Genes, chromosomes & cancer 2019PMID 30664301
- [13]Decoding the organization, dynamics, and function of the 4D genomeAboelnour E et al., Developmental cell 2021PMID 33984271
- [14]The nucleolusPederson T, Cold Spring Harbor perspectives in biology 2011PMID 21106648
- [15]Eukaryotic Ribosome AssemblyVanden Broeck A et al., Annual review of biochemistry 2024PMID 38768392
- [16]Histology, Rough Endoplasmic ReticulumSanvictores T et al., StatPearls 2023PMID 33085273
- [17]The endoplasmic reticulum: structure, function and response to cellular signalingSchwarz DS et al., Cellular and molecular life sciences 2016PMID 26433683
- [18]Structure and function of ER membrane contact sites with other organellesPhillips MJ et al., Nature reviews. Molecular cell biology 2016PMID 26627931
- [19]Endoplasmic reticulum-mitochondria contacts: function of the junctionRowland AA et al., Nature reviews. Molecular cell biology 2012PMID 22992592
- [20]Zooming into lipid droplet biology through the lens of electron microscopyDudka W et al., FEBS letters 2024PMID 38726814
- [21]Making COPII coatsKirchhausen T, Cell 2007PMID 17604713
- [22]The Golgi complex: a hub of the secretory pathwayPark K et al., BMB reports 2021PMID 33612152
- [23]Golgi glycosylationStanley P, Cold Spring Harbor perspectives in biology 2011PMID 21441588
- [24]Mechanistic insights into cargo sorting and export from the Golgi apparatusWatson ET et al., Nature reviews. Molecular cell biology 2025PMID 41214333
- [25]Mitochondrial proteins: from biogenesis to functional networksPfanner N et al., Nature reviews. Molecular cell biology 2019PMID 30626975
- [26]Structure and Function of the Mitochondrial RibosomeGreber BJ et al., Annual review of biochemistry 2016PMID 27023846
- [27]Kinetic Mathematical Modeling of Oxidative Phosphorylation in Cardiomyocyte MitochondriaTseng WW et al., Cells 2022PMID 36552784
- [28]Molecular mechanisms of mitochondrial dynamicsTábara LC et al., Nature reviews. Molecular cell biology 2025PMID 39420231
- [29]The cell biology of mitochondrial membrane dynamicsGiacomello M et al., Nature reviews. Molecular cell biology 2020PMID 32071438
- [30]Mitochondrial Machineries for Protein Import and AssemblyWiedemann N et al., Annual review of biochemistry 2017PMID 28301740
- [31]Mechanisms of mitophagyYoule RJ et al., Nature reviews. Molecular cell biology 2011PMID 21179058
- [32]Mitochondria and cell death-associated inflammationVringer E et al., Cell death and differentiation 2023PMID 36447047
- [33]Mitochondria in disease: changes in shapes and dynamicsJenkins BC et al., Trends in biochemical sciences 2024PMID 38402097
- [34]Mitochondrial dysfunction and the AKI-to-CKD transitionJiang M et al., American journal of physiology. Renal physiology 2020PMID 33073587
- [35]Rab GTPase Function in Endosome and Lysosome BiogenesisLangemeyer L et al., Trends in cell biology 2018PMID 30025982
- [36]Lysosomal quality control ReviewHenn D et al., Autophagy 2025PMID 39968899
- [37]Autophagy pathway: Cellular and molecular mechanismsYu L et al., Autophagy 2018PMID 28933638
- [38]Mechanisms of autophagy-lysosome dysfunction in neurodegenerative diseasesNixon RA et al., Nature reviews. Molecular cell biology 2024PMID 39107446
- [39]Autophagy genes in biology and diseaseYamamoto H et al., Nature reviews. Genetics 2023PMID 36635405
- [40]Peroxisome: Metabolic Functions and BiogenesisOkumoto K et al., Advances in experimental medicine and biology 2020PMID 33417203
- [41]Peroxisomes: a nexus for lipid metabolism and cellular signalingLodhi IJ et al., Cell metabolism 2014PMID 24508507
- [42]Alpha-oxidationJansen GA et al., Biochimica et biophysica acta 2006PMID 16934890
- [43]Microtubules and Microtubule-Associated ProteinsGoodson HV et al., Cold Spring Harbor perspectives in biology 2018PMID 29858272
- [44]Plasticity of cytoplasmic intermediate filament architecture determines cellular functionsSchwarz N et al., Current opinion in cell biology 2023PMID 37918274
- [45]GFAP at 50Messing A et al., ASN neuro 2020PMID 32811163
- [46]Neurofilaments as biomarkers in neurological disorders - towards clinical applicationKhalil M et al., Nature reviews. Neurology 2024PMID 38609644
- [47]Centriole structureWiney M et al., Philosophical transactions of the Royal Society of London. Series B, Biological sciences 2014PMID 25047611
- [48]Multiciliated cellsBrooks ER et al., Current biology 2014PMID 25291643
- [49]Towards an atomic model of a beating ciliary axonemeGrossman-Haham I, Current opinion in structural biology 2023PMID 36586349
- [50]Myc and cell cycle controlBretones G et al., Biochimica et biophysica acta 2015PMID 24704206
- [51]A guide to assessing cellular senescence in vitro and in vivoGonzález-Gualda E et al., The FEBS journal 2021PMID 32961620
- [52]PrometaphaseFerreira LT et al., Seminars in cell & developmental biology 2021PMID 34127384
- [53]The kinetochoreCheeseman IM, Cold Spring Harbor perspectives in biology 2014PMID 24984773
- [54]Mitotic genome foldingHirano T, The Journal of cell biology 2025PMID 40492990
- [55]Human aneuploidy: mechanisms and new insights into an age-old problemNagaoka SI et al., Nature reviews. Genetics 2012PMID 22705668