Клетка и органеллы
Модель
Наведите или коснитесь, чтобы увидеть название, щёлкните, чтобы прочитать описание; щёлкните название в легенде, чтобы перейти к структуре. Модель построена алгоритмически в гистологических пропорциях, цвета условные.
Описание
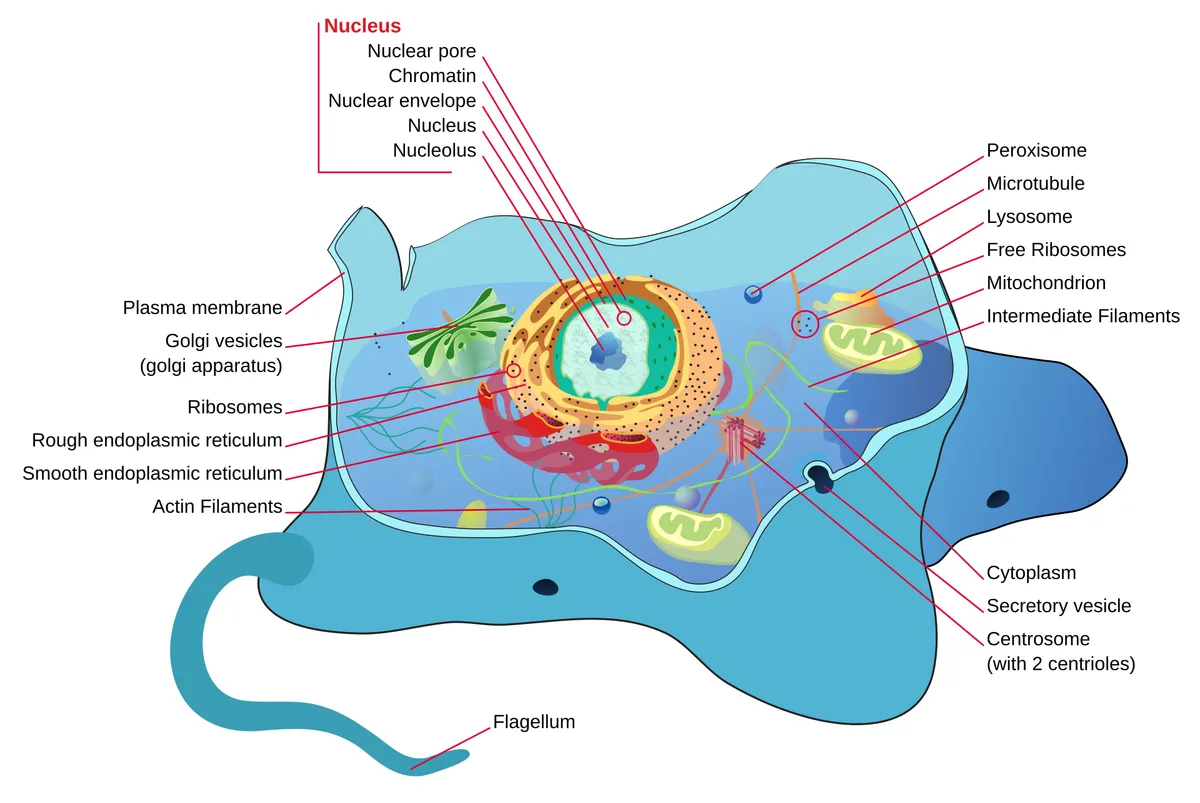
Эукариотическая клетка состоит из плазматической мембраны, окружающей цитоплазму и ядро. В цитоплазме находятся мембранные органеллы (эндоплазматическая сеть, комплекс Гольджи, митохондрии, лизосомы, пероксисомы), немембранные органеллы (рибосомы, центросома) и цитоскелет. Каждая органелла — специализированный компартмент; вместе они синтезируют, транспортируют, производят энергию, расщепляют и делятся.
Плазматическая мембрана
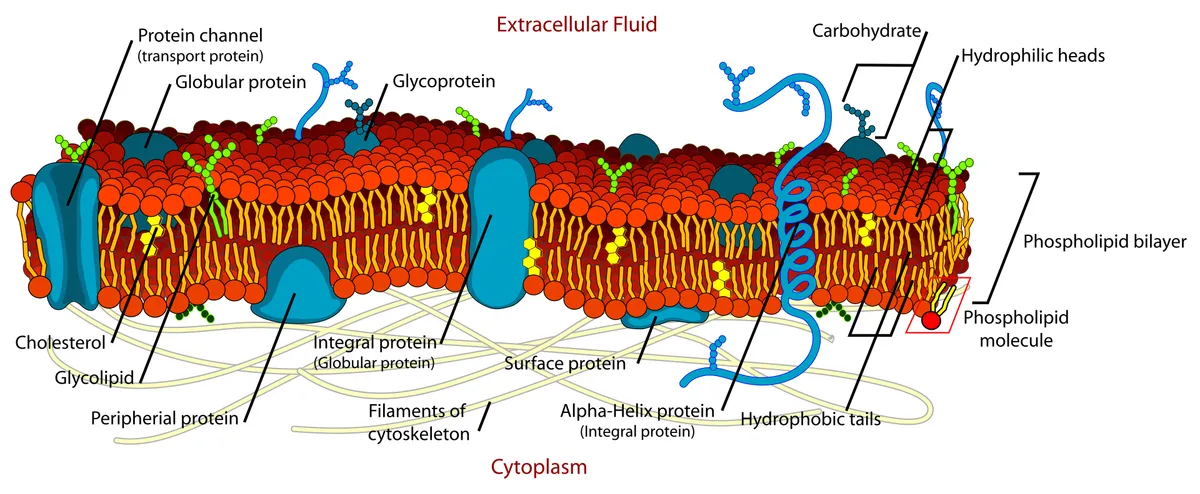
Клеточная мембрана — фосфолипидный бислой толщиной около 7–8 нм, гидрофобные хвосты которого обращены внутрь, с вкраплениями холестерина и белков. Согласно жидкостно-мозаичной модели, липиды и многие белки диффундируют латерально в плоскости мембраны; трансмембранные белки служат каналами, насосами, переносчиками и рецепторами, а периферические белки прикрепляются к любой из её сторон. Два слоя различаются: фосфатидилсерин находится во внутреннем слое, и его появление снаружи сигнализирует макрофагам убрать гибнущую клетку.[1]
Мембрана неоднородна. Холестерин и сфинголипиды склонны собираться в короткоживущие нанодомены (липидные рафты), концентрирующие определённые рецепторы и сигнальные молекулы; эта идея долго оспаривалась, поскольку домены слишком малы и мимолётны, чтобы увидеть их напрямую. Кавеолы — колбовидные впячивания размером 50–100 нм, формируемые белками кавеолинами и кавинами, обильные в эндотелии, адипоцитах и гладкой мышце; при растяжении мембраны они уплощаются, служа резервом, защищающим её от разрыва.[2][3][4]
Наружная поверхность покрыта гликокаликсом — олигосахаридными цепями гликопротеинов, гликолипидов и протеогликанов. Он определяет группы крови и опосредует узнавание и адгезию клеток; на эндотелии сосудов его толщина достигает нескольких сотен нанометров, он воспринимает напряжение сдвига от тока крови, не даёт тромбоцитам и лейкоцитам прилипать к стенке и быстро слущивается при сепсисе.[5][6]
Ядро
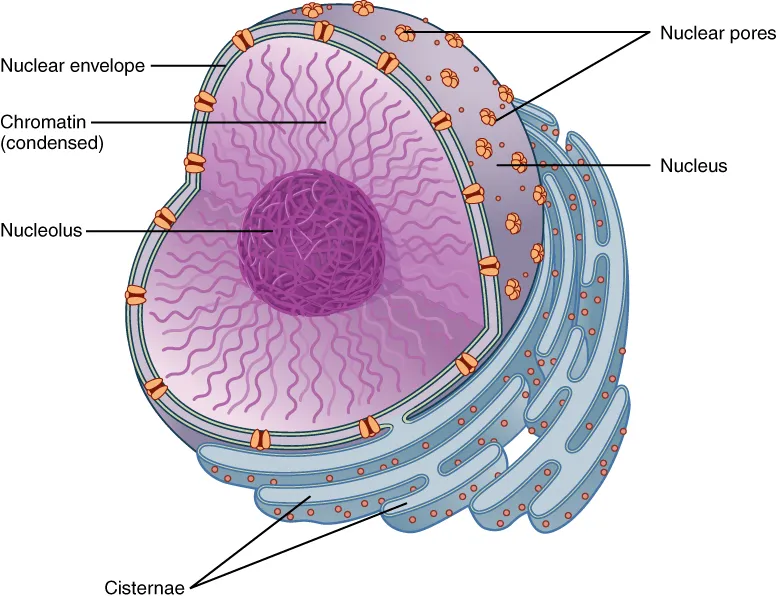
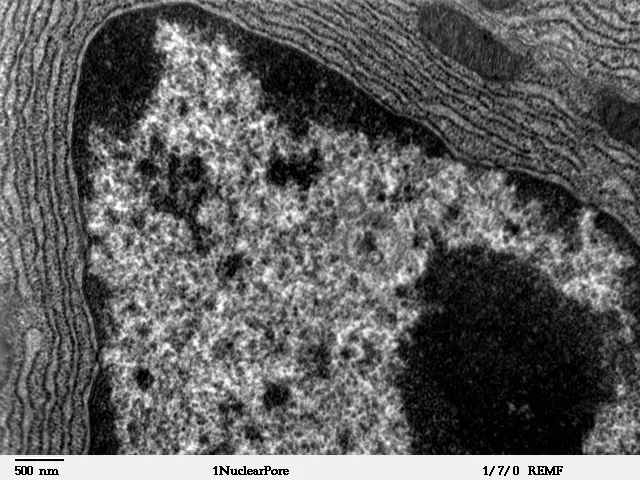
Ядро (5–10 мкм в поперечнике) окружено двойной ядерной оболочкой; наружная мембрана переходит в шероховатую ЭПС и тоже несёт рибосомы, а пространство между двумя мембранами сообщается с просветом ЭПС. Изнутри оболочку выстилает ядерная ламина из ламинов A, B и C, которая и придаёт ядру форму, и закрепляет хроматин. Мутации ламина A вызывают группу ламинопатий, таких как мышечная дистрофия Эмери–Дрейфуса и прогерия Хатчинсона–Гилфорда.[7][8]
Весь обмен между ядром и цитоплазмой идёт через ядерные поры — гигантские комплексы около 110 МДа, построенные примерно из 1000 копий около 30 нуклеопоринов с восьмилучевой симметрией. Канал заполнен сетью белковых цепей, богатых фенилаланином и глицином; малые молекулы диффундируют свободно, а крупные белки и матричные РНК должны переноситься транспортными рецепторами (импортинами, экспортинами), которые движет градиент Ran-GTP. В одном ядре несколько тысяч пор.[9][10][11]
Около 2 м ДНК намотано на нуклеосомы и затем свёрнуто на нескольких уровнях: петли хроматина, топологически ассоциированные домены (TAD), активные и неактивные компартменты и, наконец, отдельная территория для каждой хромосомы. Плотный транскрипционно молчащий гетерохроматин тяготеет к ламине и ядрышку, а рыхлый активный эухроматин занимает внутреннюю часть ядра. Ядрышко формируется без мембраны вокруг кластеров генов рибосомной РНК; здесь транскрибируется рРНК и собираются субъединицы рибосом, затем экспортируемые через поры.[12][13][14][15]
Эндоплазматическая сеть, аппарат Гольджи и секреторный путь
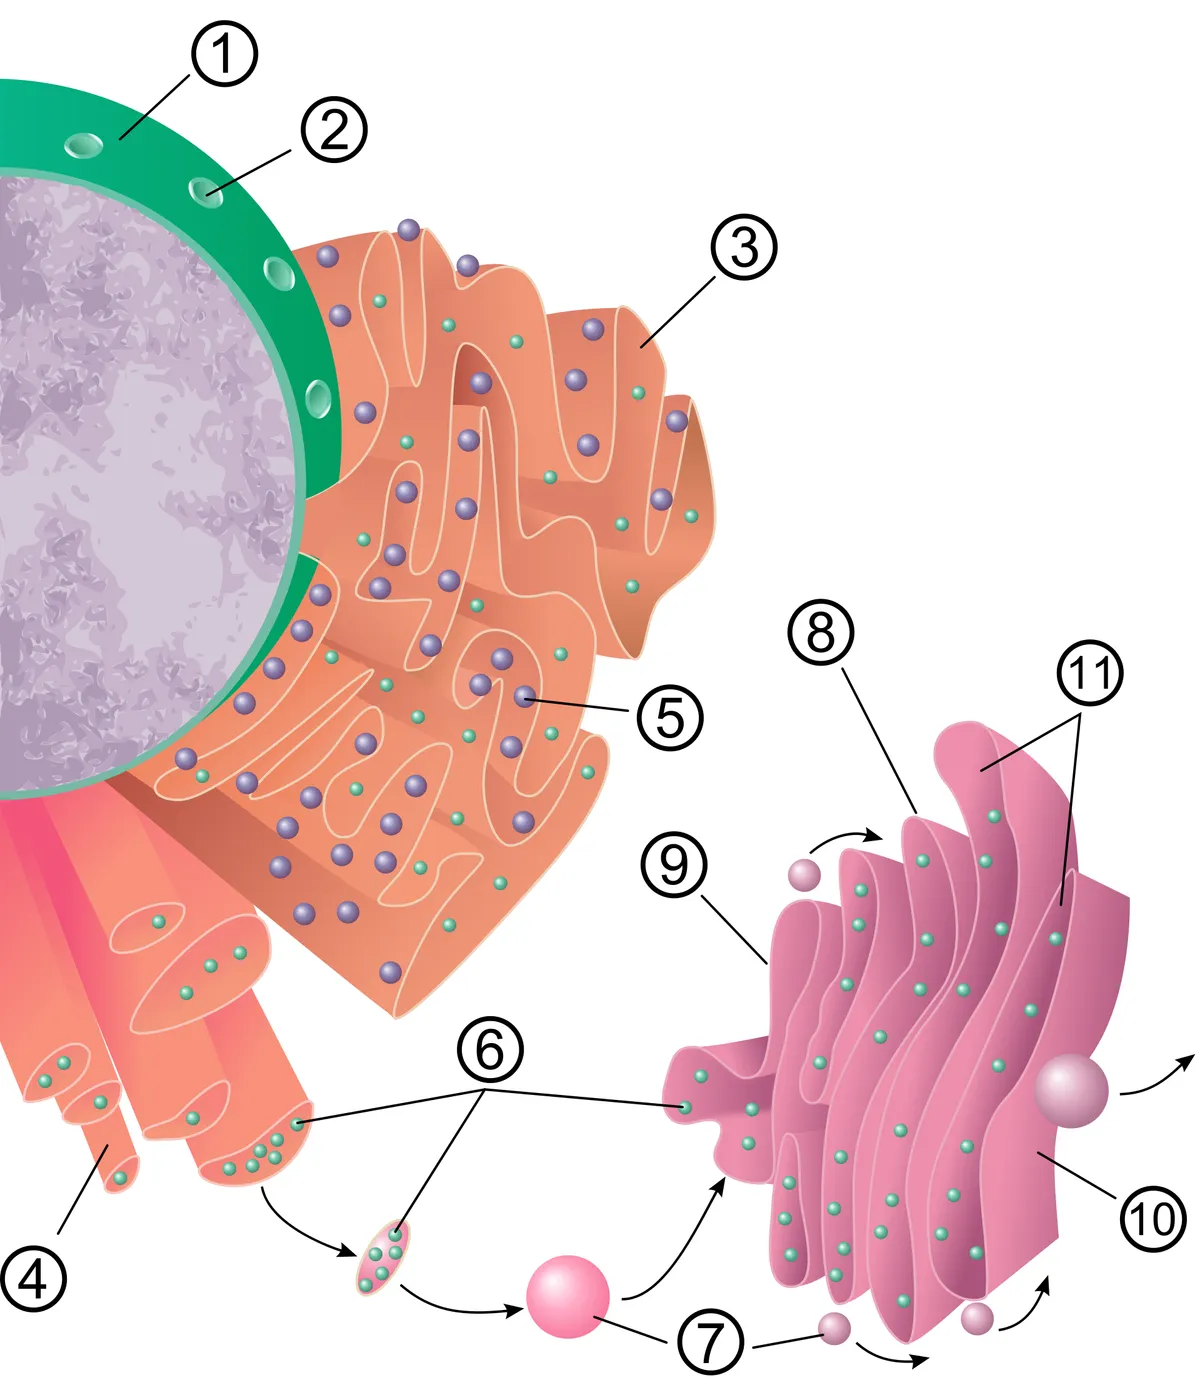
Эндоплазматическая сеть — крупнейшая непрерывная мембранная система клетки, состоящая из плоских листков и трубочек, продолжающихся в ядерную оболочку. Шероховатая ЭПС — стопки уплощённых цистерн с рибосомами на наружной поверхности: секреторные и мембранные белки и ферменты лизосом транслируются прямо в просвет, где шапероны сворачивают их, образуются дисульфидные связи и присоединяются первые N-гликаны. Неправильно свёрнутые белки задерживаются и разрушаются; при их накоплении клетка запускает ответ на несвёрнутые белки.[16][17]
Гладкая ЭПС — безрибосомная сеть трубочек, синтезирующая фосфолипиды и холестерин, стероидные гормоны (кора надпочечников, яичко), обезвреживающая лекарства ферментами цитохрома P450 (гепатоциты) и запасающая Ca²⁺; в мышце она становится саркоплазматическим ретикулумом. ЭПС также соприкасается с митохондриями, плазматической мембраной, эндосомами и липидными каплями в мембранных контактах на расстоянии 10–30 нм, где липиды и Ca²⁺ передаются без пузырьков.[18][19][20]
Белки покидают ЭПС в окаймлённых COPII пузырьках и направляются в аппарат Гольджи — поляризованную стопку из 4–8 уплощённых цистерн: цис-сторона принимает груз, транс-сторона отправляет. По мере прохождения груза гликозилтрансферазы, расположенные от цис- к транс-стороне, последовательно подрезают и наращивают гликаны, а ферменты лизосом получают метку маннозо-6-фосфата. В транс-сети Гольджи груз сортируется по трём путям: пузырьки к лизосомам, конститутивная секреция к мембране и регулируемые секреторные гранулы, хранящиеся до прихода сигнала (инсулин, ферменты поджелудочной железы).[21][22][23][24]
Митохондрии
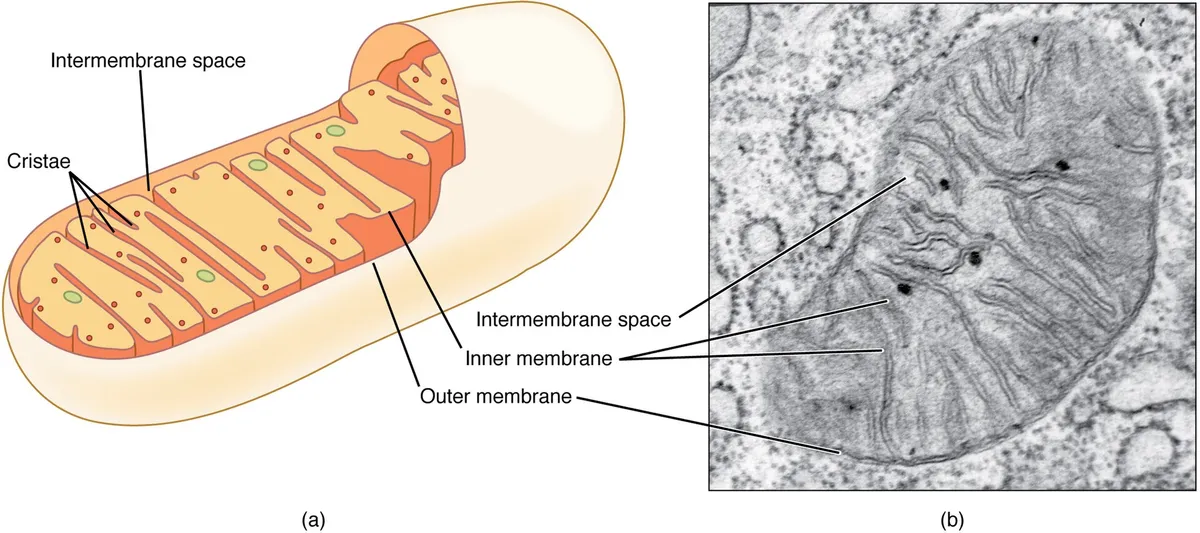
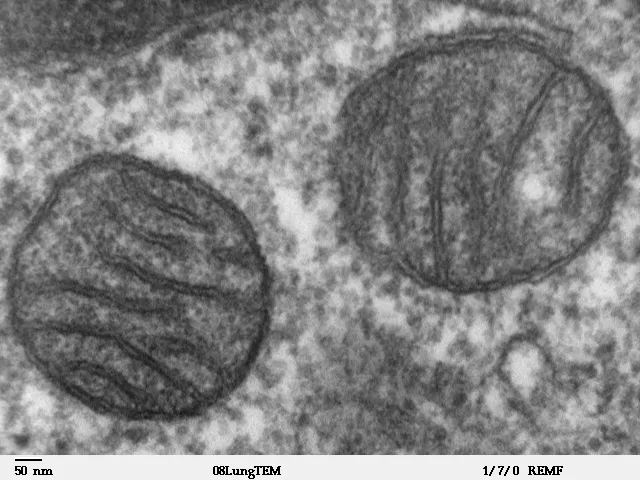
Митохондрии имеют две мембраны: гладкую наружную, проницаемую для малых молекул, и внутреннюю, образующую кристы и несущую дыхательную цепь и АТФ-синтазу. Протонный градиент на внутренней мембране вращает АТФ-синтазу и даёт большую часть АТФ клетки; в матриксе находятся ферменты цикла Кребса и окисления жирных кислот, кольцевая митохондриальная ДНК (37 генов) и собственные рибосомы. Их число соответствует энергетическим потребностям: в кардиомиоците они занимают около трети объёма.[25][26][27]
Митохондрии — не фиксированные отдельные гранулы, а динамичная сеть, постоянно сливающаяся и делящаяся. Слияние (митофузины наружной мембраны, OPA1 внутренней) обобществляет белки и ДНК; деление, при котором динамин DRP1 перетягивает органеллу в местах контакта с ЭПС, отделяет повреждённые участки для удаления митофагией. Около 99 % митохондриальных белков кодируются ядерными генами и импортируются через комплексы TOM и TIM.[28][29][30][31]
Помимо энергии, митохондрии буферизуют Ca²⁺, производят активные формы кислорода, используемые как сигналы, и решают судьбу клетки при программируемой гибели: при пермеабилизации наружной мембраны выходит цитохром c и активирует каспазы. Митохондриальная ДНК, попавшая в цитозоль, распознаётся как чужая и запускает воспаление. Нарушения формы и динамики митохондрий отмечаются при нейродегенерации, сердечной недостаточности и болезнях почек.[32][33][34]
Лизосомы, аутофагия и пероксисомы
Лизосомы — одномембранные пузырьки, кислый просвет которых (pH около 4,5–5, поддерживаемый протонным насосом V-АТФазой) содержит более 50 гидролаз. Материал попадает в них тремя путями: эндоцитозом (рецепторы и жидкость с мембраны через ранние и поздние эндосомы), фагоцитозом (бактерии и мёртвые клетки в макрофагах) и аутофагией. Созревание эндосомы в лизосому направляют ГТФазы Rab5, а затем Rab7. Отсутствие одного лизосомного фермента вызывает болезнь накопления, например болезнь Гоше или Тея–Сакса.[35][36]
При аутофагии двойная мембрана охватывает участок цитоплазмы, белковые агрегаты или повреждённые органеллы, образуя аутофагосому, которая сливается с лизосомой для переваривания и повторного использования продуктов. Аутофагия жизненно важна при голодании и служит главной системой контроля качества нейронов, которые не могут разбавить отходы делением; сбой пути аутофагия–лизосома вносит вклад в болезни Альцгеймера, Паркинсона и Гентингтона.[37][38][39]
Пероксисомы — мелкие (0,2–1 мкм) одномембранные пузырьки с оксидазами, образующими H₂O₂, и каталазой, разрушающей его. Они осуществляют β-окисление жирных кислот с очень длинной цепью, α-окисление фитановой кислоты и синтезируют плазмалогены (ключевые липиды миелина) и желчные кислоты. Их белки импортируются из цитозоля пероксинами (гены PEX), дефекты которых вызывают нарушения биогенеза пероксисом, такие как синдром Целльвегера.[40][41][42]
Цитоскелет
Цитоскелет образован тремя системами филаментов. Актиновые микрофиламенты (7 нм) наиболее плотны в кортикальном слое под мембраной, строят микроворсинки, ламеллоподии и цитокинетическое кольцо и вместе с миозином создают силу. Микротрубочки (25 нм) — полые трубки из α/β-тубулина, растущие от центросомы плюс-концами наружу; они постоянно растут и разрушаются («динамическая нестабильность»), служат рельсами для кинезинов (к периферии) и динеинов (к центру) и образуют веретено деления.[43]
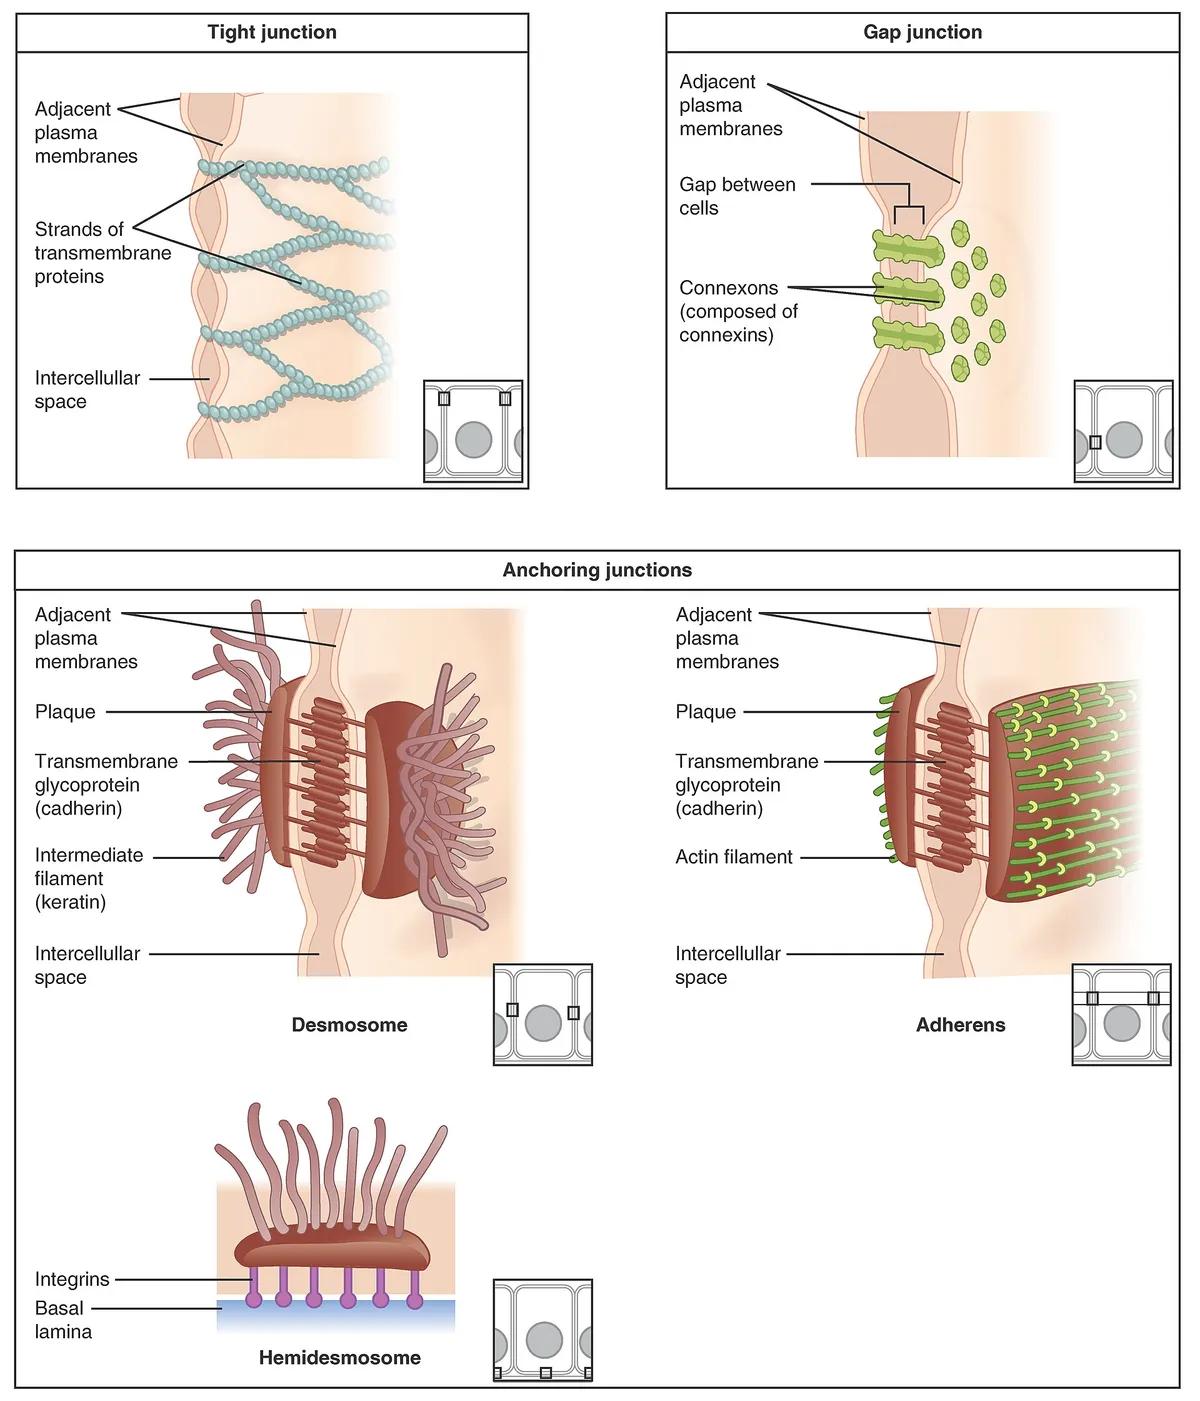
Промежуточные филаменты (10 нм) механически прочны и специфичны для типа клеток: кератины в эпителии, виментин в мезенхимных клетках, десмин в мышце, GFAP в астроцитах, нейрофиламенты в нейронах и ламины в ядре. Они крепятся к десмосомам и полудесмосомам, распределяя натяжение по ткани; при мутациях кератинов кожа покрывается пузырями от лёгкого трения. Благодаря специфичности они служат опухолевыми маркерами, а нейрофиламенты в крови — биомаркером повреждения аксонов.[44][45][46]
Центросома состоит из двух перпендикулярных центриолей — цилиндров диаметром около 250 нм и длиной 500 нм, стенка которых образована девятью триплетами микротрубочек, — окружённых перицентриолярным материалом, где нуклеируются микротрубочки. Центриоли служат также базальными тельцами ресничек: аксонема имеет строение 9 + 2, и динеины заставляют ресничку биться. Многоресничные клетки дыхательных путей несут сотни синхронно бьющихся ресничек, перемещающих слизь; цилиарная дискинезия вызывает рецидивирующие бронхиты, синуситы и бесплодие.[47][48][49]
Клеточный цикл и деление
Клеточный цикл включает интерфазу (G1, S — репликация ДНК, G2) и фазу M. Контрольные точки, управляемые комплексами циклин–CDK, позволяют клетке продвигаться дальше, лишь когда ДНК цела и полностью скопирована; транскрипционный фактор MYC вводит клетки в цикл и гиперактивен во многих опухолях. Высокодифференцированные клетки, например нейроны, навсегда выходят из цикла в G0; стареющие клетки окончательно прекращают делиться, но продолжают выделять провоспалительные факторы.[50][51]
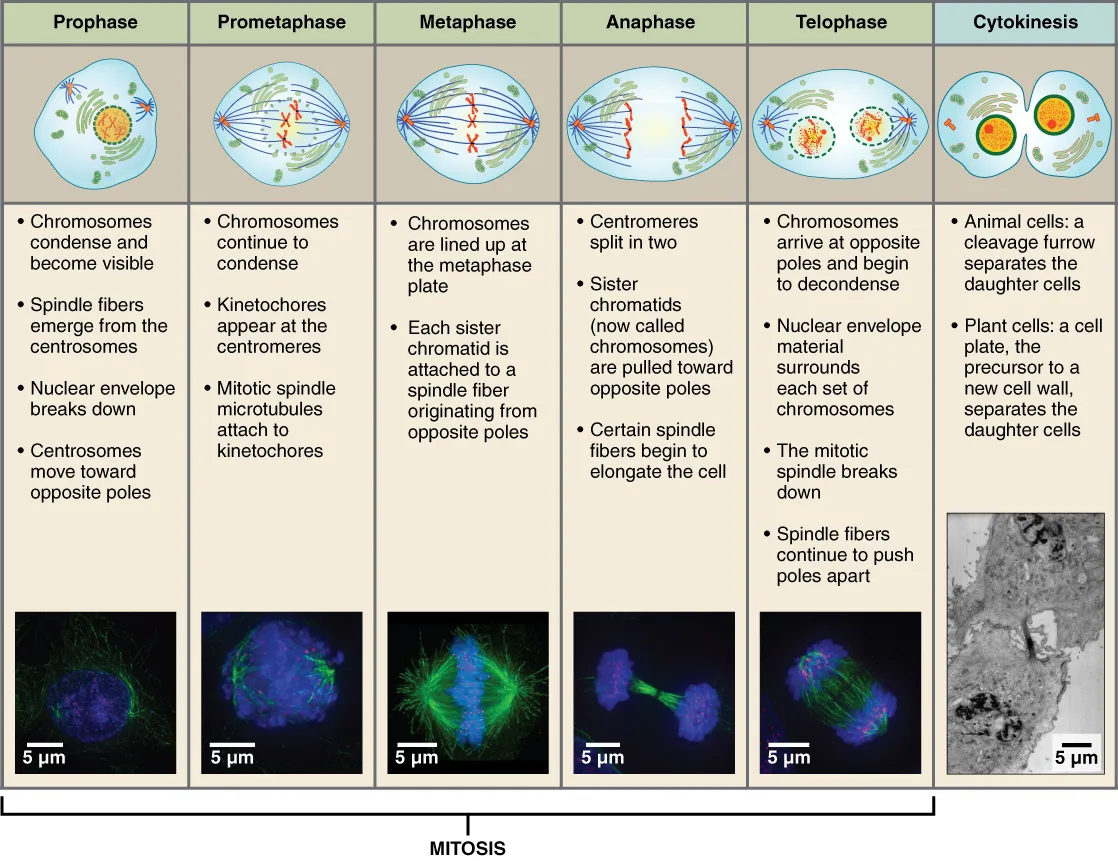
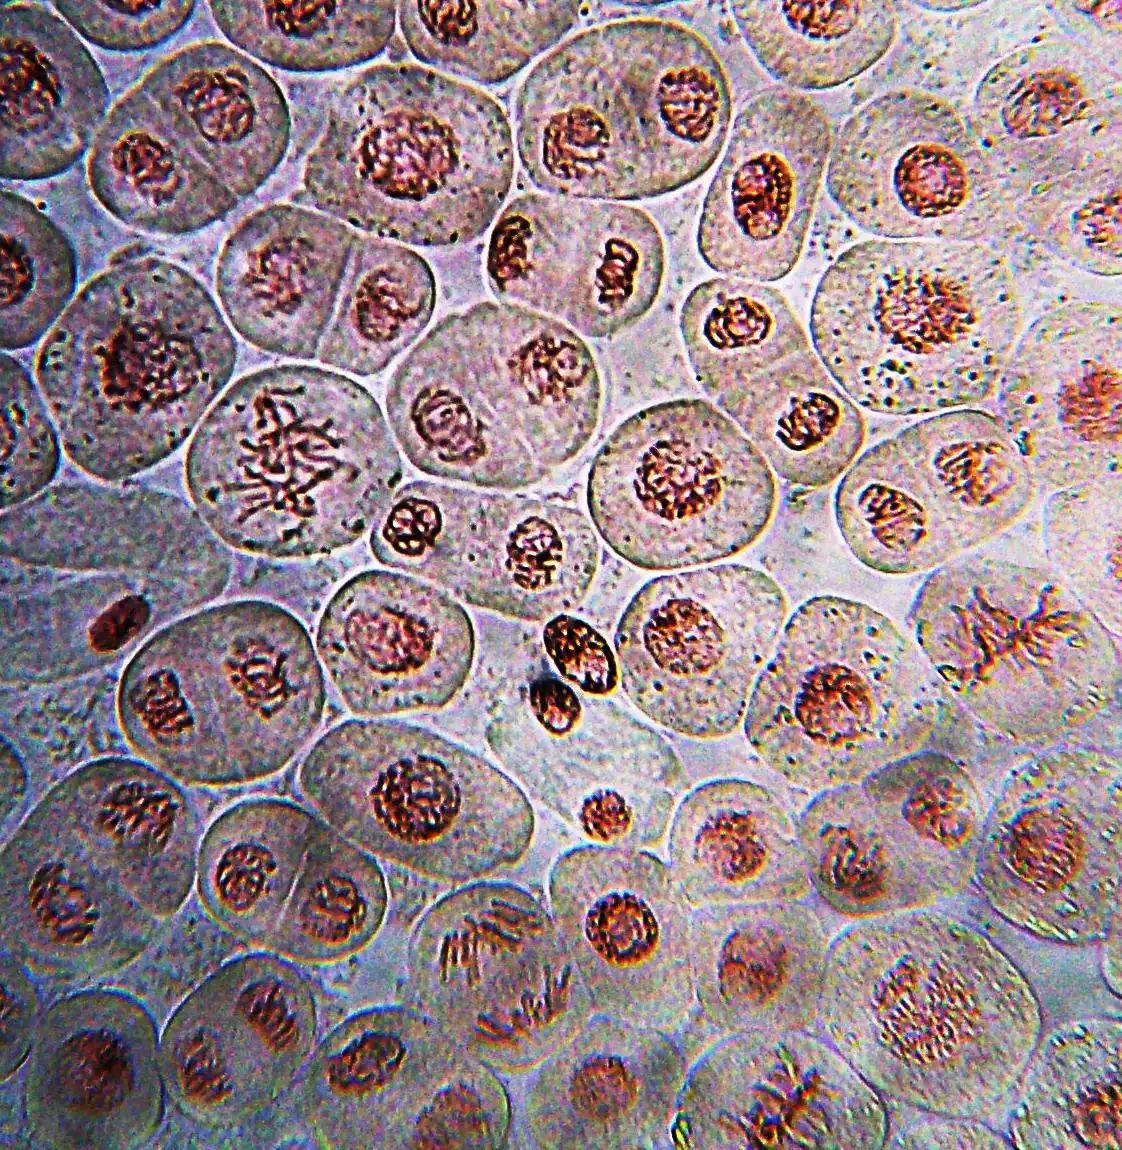
В митозе хромосомы конденсируются, ядерная оболочка распадается (профаза, прометафаза), и микротрубочки веретена захватывают центромеры через кинетохоры — белковые комплексы на центромере, связывающие концы микротрубочек. Контрольная точка веретена удерживает клетку в метафазе, пока каждая хромосома не прикрепится к обоим полюсам; затем когезин расщепляется, сестринские хроматиды расходятся (анафаза), ядерная оболочка восстанавливается (телофаза), а актомиозиновое кольцо перешнуровывает цитоплазму надвое. Ошибки расхождения приводят к анеуплоидии — ведущей причине выкидышей и отличительному признаку многих опухолей.[52][53][54][55]
Полный текст (StatPearls)
Главы StatPearls по этой теме приведены дословно. Лицензия CC BY-NC-ND 4.0 разрешает только копии без изменений, поэтому они не переведены и не сокращены.
Anatomy, Back, Nucleus PulposusNedresky D, Reddy V, Singh G · StatPearls 2023 · NBK535373 · 8k знаков
Загрузка…
Nedresky D, Reddy V, Singh G. Anatomy, Back, Nucleus Pulposus. StatPearls [Internet]. Treasure Island (FL): StatPearls Publishing; 2023. NBK535373 · PMID 30570994 · CC BY-NC-ND 4.0. Приведено дословно, без изменений.
Histology, Rough Endoplasmic ReticulumSanvictores T, Davis DD · StatPearls 2023 · NBK563126 · 7k знаков
Загрузка…
Sanvictores T, Davis DD. Histology, Rough Endoplasmic Reticulum. StatPearls [Internet]. Treasure Island (FL): StatPearls Publishing; 2023. NBK563126 · PMID 33085273 · CC BY-NC-ND 4.0. Приведено дословно, без изменений.
Органы этой системы
Литература
Источники значений и описаний на этой странице, индексированные в PubMed (Национальная медицинская библиотека США).
- [1]Essay on Biomembrane StructureGerle C, The Journal of membrane biology 2019PMID 30877332
- [2]Lipid Rafts: Controversies Resolved, Mysteries RemainLevental I et al., Trends in cell biology 2020PMID 32302547
- [3]Lipid rafts as a membrane-organizing principleLingwood D et al., Science 2010PMID 20044567
- [4]CaveolaeParton RG et al., Current biology 2018PMID 29689223
- [5]The endothelial glycocalyx: composition, functions, and visualizationReitsma S et al., Pflugers Archiv 2007PMID 17256154
- [6]The glycocalyx: a novel diagnostic and therapeutic target in sepsisUchimido R et al., Critical care 2019PMID 30654825
- [7]Lamina-associated domains: Tethers and loosenersManzo SG et al., Current opinion in cell biology 2022PMID 35189475
- [8]Shared mechanisms in physiological and pathological nucleoplasmic reticulum formationDrozdz MM et al., Nucleus 2017PMID 27797635
- [9]The Structure of the Nuclear Pore Complex (An Update)Lin DH et al., Annual review of biochemistry 2019PMID 30883195
- [10]Structure, function and assembly of nuclear pore complexesPetrovic S et al., Nature reviews. Molecular cell biology 2026PMID 40926106
- [11]Aggregation, Phase Separation and Spatial Morphologies of the Assemblies of FG NucleoporinsZilman A, Journal of molecular biology 2018PMID 30017917
- [12]Chromosome territories and the global regulation of the genomeFritz AJ et al., Genes, chromosomes & cancer 2019PMID 30664301
- [13]Decoding the organization, dynamics, and function of the 4D genomeAboelnour E et al., Developmental cell 2021PMID 33984271
- [14]The nucleolusPederson T, Cold Spring Harbor perspectives in biology 2011PMID 21106648
- [15]Eukaryotic Ribosome AssemblyVanden Broeck A et al., Annual review of biochemistry 2024PMID 38768392
- [16]Histology, Rough Endoplasmic ReticulumSanvictores T et al., StatPearls 2023PMID 33085273
- [17]The endoplasmic reticulum: structure, function and response to cellular signalingSchwarz DS et al., Cellular and molecular life sciences 2016PMID 26433683
- [18]Structure and function of ER membrane contact sites with other organellesPhillips MJ et al., Nature reviews. Molecular cell biology 2016PMID 26627931
- [19]Endoplasmic reticulum-mitochondria contacts: function of the junctionRowland AA et al., Nature reviews. Molecular cell biology 2012PMID 22992592
- [20]Zooming into lipid droplet biology through the lens of electron microscopyDudka W et al., FEBS letters 2024PMID 38726814
- [21]Making COPII coatsKirchhausen T, Cell 2007PMID 17604713
- [22]The Golgi complex: a hub of the secretory pathwayPark K et al., BMB reports 2021PMID 33612152
- [23]Golgi glycosylationStanley P, Cold Spring Harbor perspectives in biology 2011PMID 21441588
- [24]Mechanistic insights into cargo sorting and export from the Golgi apparatusWatson ET et al., Nature reviews. Molecular cell biology 2025PMID 41214333
- [25]Mitochondrial proteins: from biogenesis to functional networksPfanner N et al., Nature reviews. Molecular cell biology 2019PMID 30626975
- [26]Structure and Function of the Mitochondrial RibosomeGreber BJ et al., Annual review of biochemistry 2016PMID 27023846
- [27]Kinetic Mathematical Modeling of Oxidative Phosphorylation in Cardiomyocyte MitochondriaTseng WW et al., Cells 2022PMID 36552784
- [28]Molecular mechanisms of mitochondrial dynamicsTábara LC et al., Nature reviews. Molecular cell biology 2025PMID 39420231
- [29]The cell biology of mitochondrial membrane dynamicsGiacomello M et al., Nature reviews. Molecular cell biology 2020PMID 32071438
- [30]Mitochondrial Machineries for Protein Import and AssemblyWiedemann N et al., Annual review of biochemistry 2017PMID 28301740
- [31]Mechanisms of mitophagyYoule RJ et al., Nature reviews. Molecular cell biology 2011PMID 21179058
- [32]Mitochondria and cell death-associated inflammationVringer E et al., Cell death and differentiation 2023PMID 36447047
- [33]Mitochondria in disease: changes in shapes and dynamicsJenkins BC et al., Trends in biochemical sciences 2024PMID 38402097
- [34]Mitochondrial dysfunction and the AKI-to-CKD transitionJiang M et al., American journal of physiology. Renal physiology 2020PMID 33073587
- [35]Rab GTPase Function in Endosome and Lysosome BiogenesisLangemeyer L et al., Trends in cell biology 2018PMID 30025982
- [36]Lysosomal quality control ReviewHenn D et al., Autophagy 2025PMID 39968899
- [37]Autophagy pathway: Cellular and molecular mechanismsYu L et al., Autophagy 2018PMID 28933638
- [38]Mechanisms of autophagy-lysosome dysfunction in neurodegenerative diseasesNixon RA et al., Nature reviews. Molecular cell biology 2024PMID 39107446
- [39]Autophagy genes in biology and diseaseYamamoto H et al., Nature reviews. Genetics 2023PMID 36635405
- [40]Peroxisome: Metabolic Functions and BiogenesisOkumoto K et al., Advances in experimental medicine and biology 2020PMID 33417203
- [41]Peroxisomes: a nexus for lipid metabolism and cellular signalingLodhi IJ et al., Cell metabolism 2014PMID 24508507
- [42]Alpha-oxidationJansen GA et al., Biochimica et biophysica acta 2006PMID 16934890
- [43]Microtubules and Microtubule-Associated ProteinsGoodson HV et al., Cold Spring Harbor perspectives in biology 2018PMID 29858272
- [44]Plasticity of cytoplasmic intermediate filament architecture determines cellular functionsSchwarz N et al., Current opinion in cell biology 2023PMID 37918274
- [45]GFAP at 50Messing A et al., ASN neuro 2020PMID 32811163
- [46]Neurofilaments as biomarkers in neurological disorders - towards clinical applicationKhalil M et al., Nature reviews. Neurology 2024PMID 38609644
- [47]Centriole structureWiney M et al., Philosophical transactions of the Royal Society of London. Series B, Biological sciences 2014PMID 25047611
- [48]Multiciliated cellsBrooks ER et al., Current biology 2014PMID 25291643
- [49]Towards an atomic model of a beating ciliary axonemeGrossman-Haham I, Current opinion in structural biology 2023PMID 36586349
- [50]Myc and cell cycle controlBretones G et al., Biochimica et biophysica acta 2015PMID 24704206
- [51]A guide to assessing cellular senescence in vitro and in vivoGonzález-Gualda E et al., The FEBS journal 2021PMID 32961620
- [52]PrometaphaseFerreira LT et al., Seminars in cell & developmental biology 2021PMID 34127384
- [53]The kinetochoreCheeseman IM, Cold Spring Harbor perspectives in biology 2014PMID 24984773
- [54]Mitotic genome foldingHirano T, The Journal of cell biology 2025PMID 40492990
- [55]Human aneuploidy: mechanisms and new insights into an age-old problemNagaoka SI et al., Nature reviews. Genetics 2012PMID 22705668