Cellule et organites
Modèle
Survolez ou touchez pour voir les noms, cliquez pour lire la description ; cliquez un nom de la légende pour vous y rendre. Modèle généré selon les proportions histologiques, couleurs conventionnelles.
Description
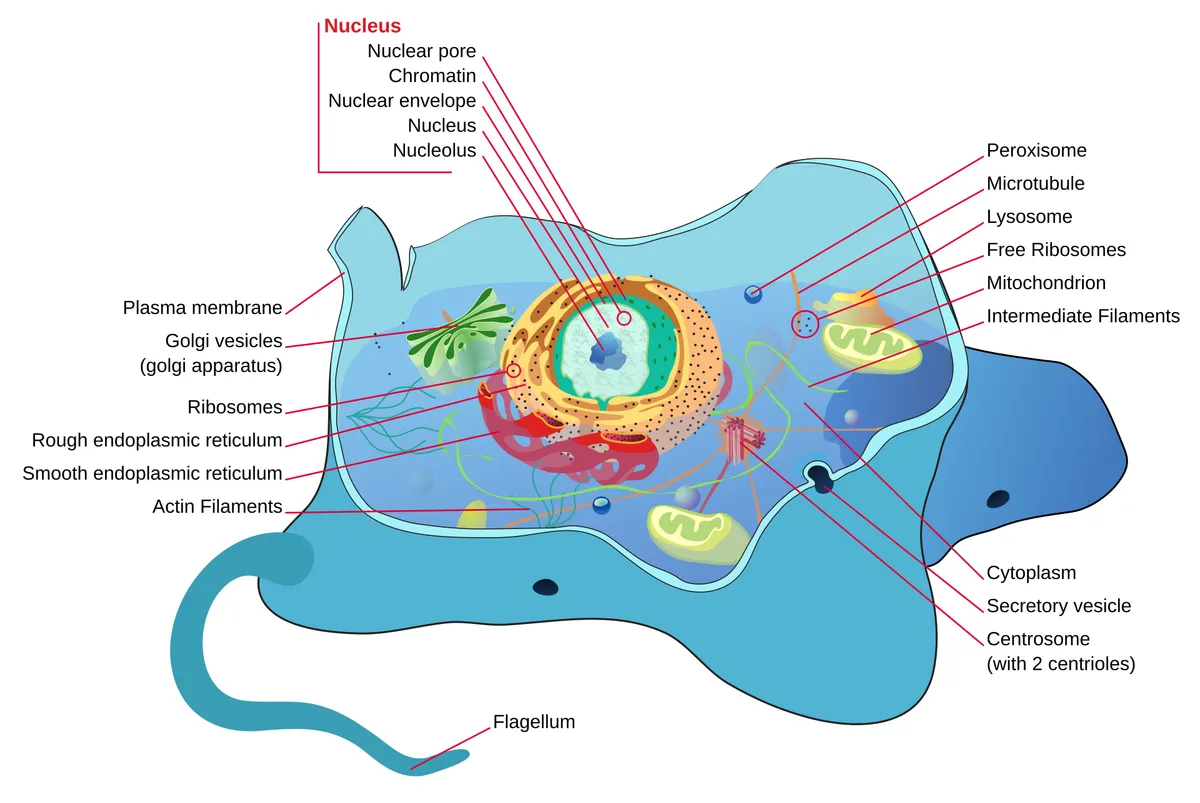
La cellule eucaryote comprend une membrane plasmique entourant le cytoplasme et le noyau. Le cytoplasme contient des organites membranaires (réticulum endoplasmique, appareil de Golgi, mitochondries, lysosomes, peroxysomes), des organites non membranaires (ribosomes, centrosome) et le cytosquelette. Chaque organite est un compartiment spécialisé ; ensemble ils synthétisent, transportent, produisent l’énergie, dégradent et se divisent.
Membrane plasmique
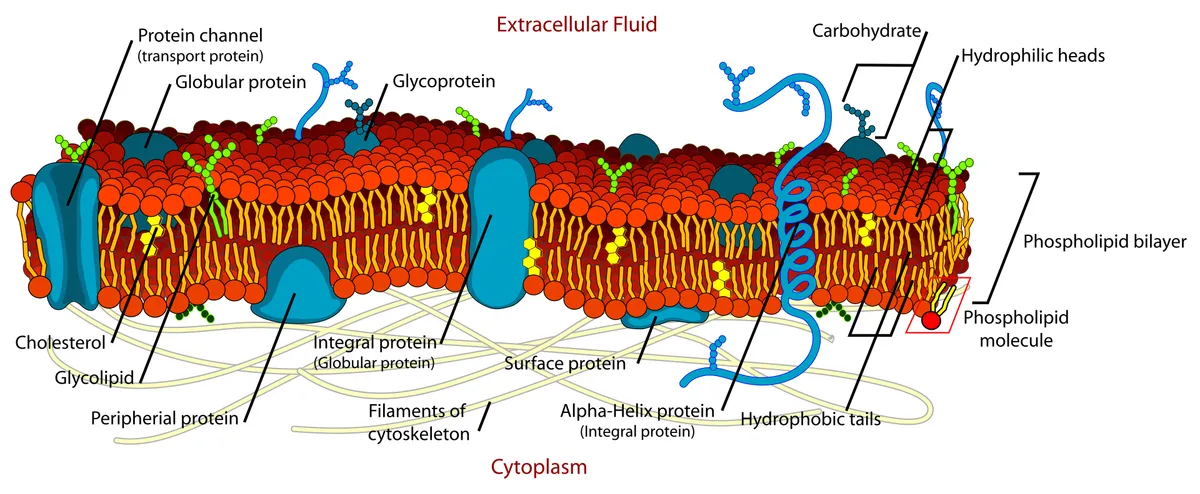
La membrane est une bicouche de phospholipides d’environ 7–8 nm, queues hydrophobes face à face, parsemée de cholestérol et de protéines. Selon le modèle de la mosaïque fluide, lipides et nombreuses protéines diffusent latéralement ; les protéines transmembranaires forment canaux, pompes, transporteurs et récepteurs, les protéines périphériques s’attachent à l’une des faces. Les deux feuillets sont asymétriques : la phosphatidylsérine est interne, et son exposition externe signale aux macrophages une cellule mourante.[1]
La membrane n’est pas homogène. Cholestérol et sphingolipides forment des nanodomaines éphémères (radeaux lipidiques) qui concentrent certains récepteurs et molécules de signalisation ; le concept fut longtemps débattu car ces domaines sont trop petits et fugaces pour être vus directement. Les cavéoles, invaginations de 50–100 nm modelées par la cavéoline et les cavines, abondent dans l’endothélium, les adipocytes et le muscle lisse ; elles s’aplatissent quand la membrane est étirée, réserve qui la protège de la rupture.[2][3][4]
La face externe est recouverte du glycocalyx, chaînes oligosaccharidiques des glycoprotéines, glycolipides et protéoglycanes. Il détermine les groupes sanguins et assure reconnaissance et adhérence cellulaires ; sur l’endothélium il atteint plusieurs centaines de nanomètres, perçoit le cisaillement du flux, empêche plaquettes et leucocytes d’adhérer et se dégrade vite au cours du sepsis.[5][6]
Noyau
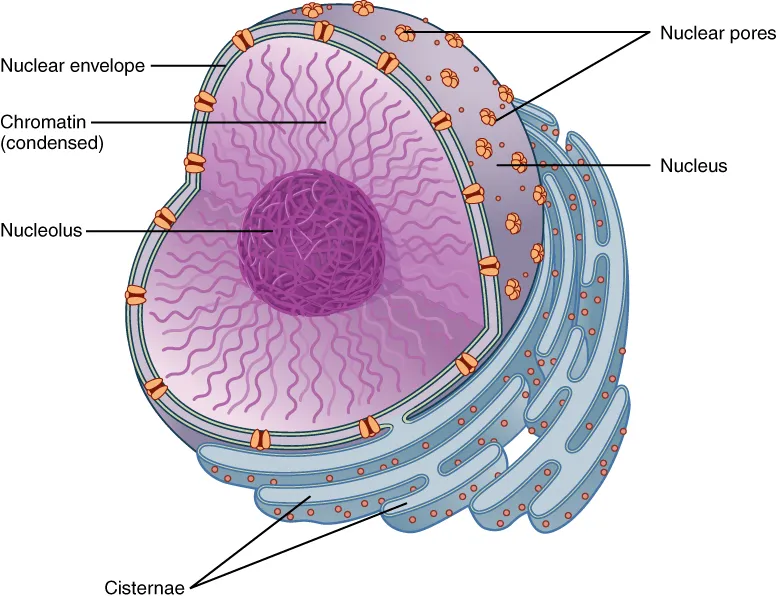
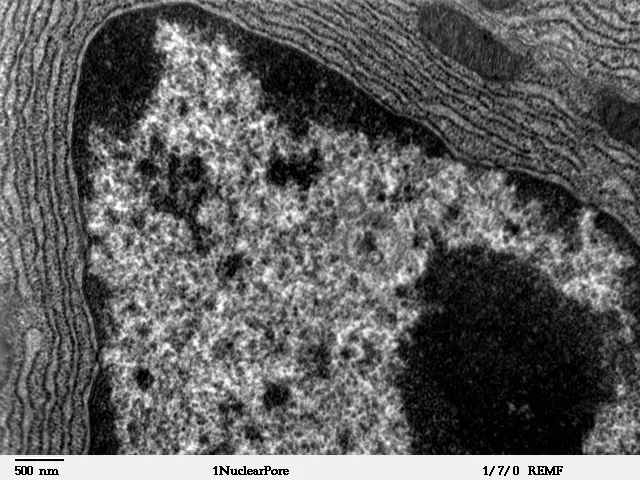
Le noyau (5–10 µm) est limité par une enveloppe double ; la membrane externe, porteuse de ribosomes, prolonge le réticulum granuleux et l’espace périnucléaire communique avec sa lumière. La face interne est tapissée par la lamina nucléaire (lamines A, B et C), qui maintient la forme du noyau et ancre la chromatine. Les mutations de la lamine A causent des laminopathies, comme la dystrophie d’Emery-Dreifuss ou la progéria de Hutchinson-Gilford.[7][8]
Tous les échanges noyau–cytoplasme passent par les pores nucléaires : complexes géants d’environ 110 MDa formés d’un millier de copies d’une trentaine de nucléoporines en symétrie d’ordre huit. Le canal contient un maillage de chaînes riches en phénylalanine-glycine ; les petites molécules diffusent librement, les grosses protéines et les ARN messagers sont transportés par des récepteurs (importines, exportines) grâce au gradient de Ran-GTP. Un noyau compte plusieurs milliers de pores.[9][10][11]
Environ 2 m d’ADN s’enroulent autour des nucléosomes puis se replient sur plusieurs niveaux : boucles, domaines topologiques (TAD), compartiments actifs et inactifs, et enfin un territoire propre à chaque chromosome. L’hétérochromatine dense, peu transcrite, borde la lamina et le nucléole ; l’euchromatine ouverte et active occupe l’intérieur. Le nucléole se forme sans membrane autour des gènes d’ARN ribosomique : l’ARNr y est transcrit et les sous-unités ribosomiques y sont assemblées avant leur export par les pores.[12][13][14][15]
Réticulum, Golgi et voie de sécrétion
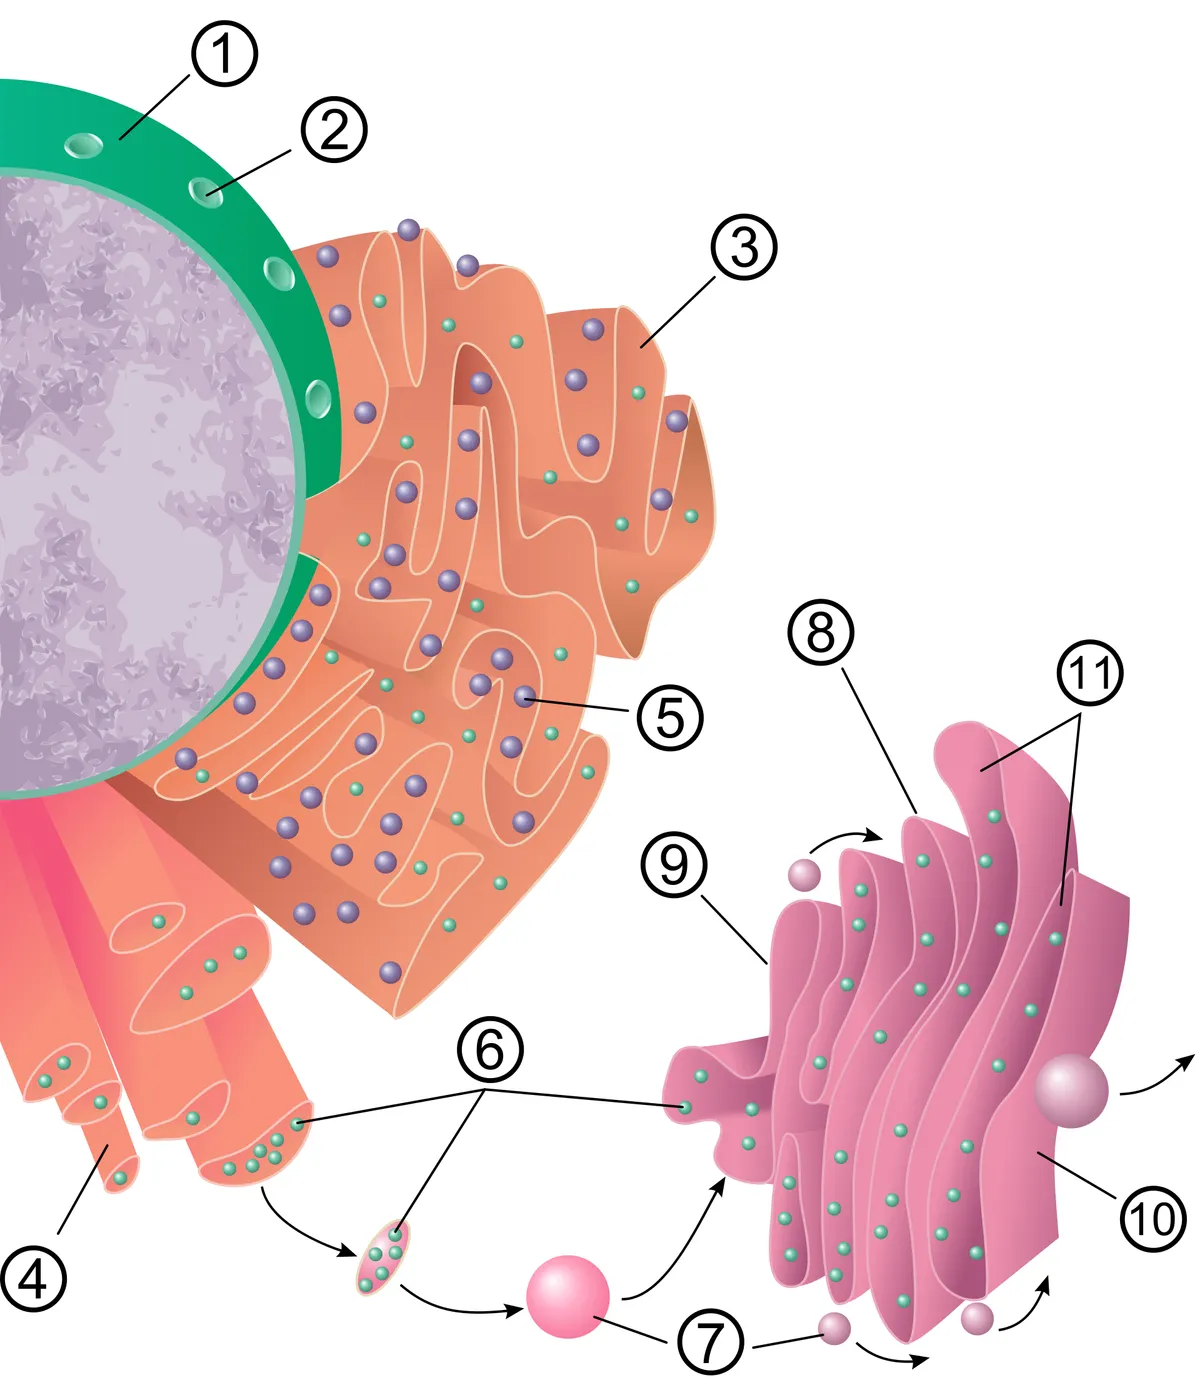
Le réticulum endoplasmique est le plus vaste système membranaire continu de la cellule, fait de feuillets et de tubules en continuité avec l’enveloppe nucléaire. Le réticulum granuleux est formé de citernes aplaties empilées portant des ribosomes : protéines sécrétées, membranaires et enzymes lysosomales y sont traduites directement dans la lumière, repliées par des chaperons, pontées par des liaisons disulfure et dotées de leurs premiers N-glycanes. Les protéines mal repliées sont retenues et dégradées ; leur accumulation déclenche la réponse aux protéines mal repliées.[16][17]
Le réticulum lisse est un réseau tubulaire sans ribosomes : synthèse des phospholipides et du cholestérol, des stéroïdes (corticosurrénale, testicule), détoxication des médicaments par les cytochromes P450 (hépatocyte) et stockage du Ca²⁺ ; dans le muscle il devient réticulum sarcoplasmique. Le réticulum contacte mitochondries, membrane plasmique, endosomes et gouttelettes lipidiques par des sites de contact distants de 10–30 nm, où lipides et Ca²⁺ sont transférés sans vésicules.[18][19][20]
Les protéines quittent le réticulum dans des vésicules à manteau COPII vers l’appareil de Golgi, pile polarisée de 4 à 8 citernes : la face cis reçoit, la face trans expédie. Au fil des citernes, les glycanes sont rognés puis complétés dans l’ordre par des glycosyltransférases étagées de cis à trans ; les enzymes lysosomales reçoivent un marqueur mannose-6-phosphate. Au réseau trans-golgien, les cargaisons sont triées vers les lysosomes, la sécrétion constitutive ou les grains de sécrétion régulée stockés jusqu’au signal (insuline, enzymes pancréatiques).[21][22][23][24]
Mitochondries
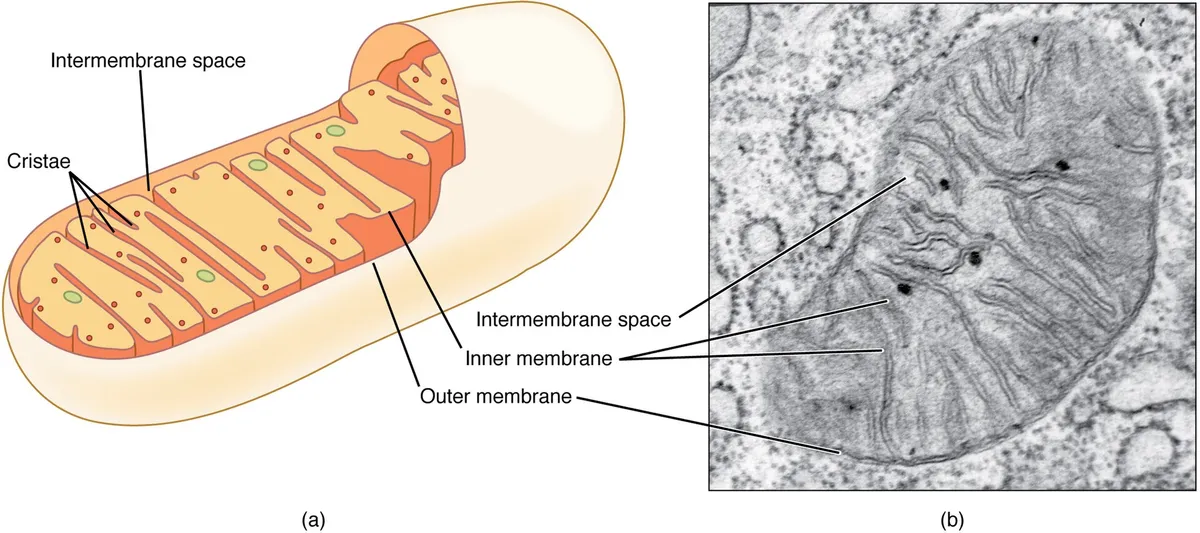
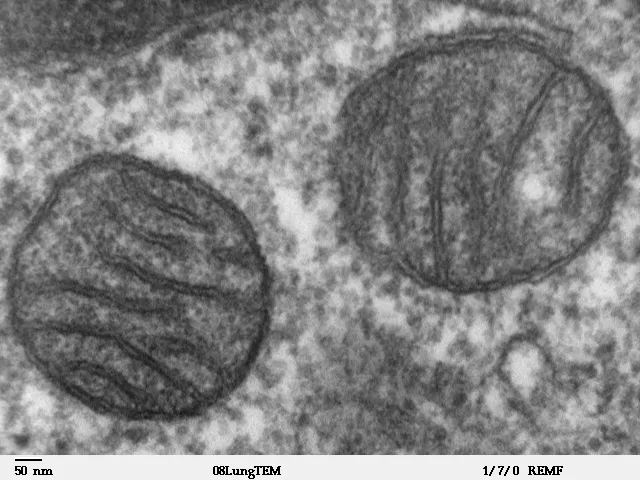
Les mitochondries ont deux membranes : l’externe, lisse, perméable aux petites molécules, et l’interne, plissée en crêtes portant la chaîne respiratoire et l’ATP synthase. Le gradient de protons de la membrane interne entraîne l’ATP synthase et fournit l’essentiel de l’ATP ; la matrice contient les enzymes du cycle de Krebs et de la β-oxydation, l’ADN mitochondrial circulaire (37 gènes) et des ribosomes propres. Leur nombre suit la demande énergétique : un tiers du volume du cardiomyocyte.[25][26][27]
Les mitochondries ne sont pas des grains isolés figés mais un réseau dynamique qui fusionne et se divise sans cesse. La fusion (mitofusines de la membrane externe, OPA1 de l’interne) partage protéines et ADN ; la fission, par la dynamine DRP1 qui étrangle l’organite aux contacts avec le réticulum, isole les parties lésées éliminées par mitophagie. Près de 99 % des protéines mitochondriales sont codées par le noyau et importées par les complexes TOM et TIM.[28][29][30][31]
Au-delà de l’énergie, les mitochondries tamponnent le Ca²⁺, produisent des espèces réactives de l’oxygène servant de signaux et décident de la mort programmée : la perméabilisation de la membrane externe libère le cytochrome c qui active les caspases. L’ADN mitochondrial libéré dans le cytosol est perçu comme étranger et entretient l’inflammation. Les troubles de forme et de dynamique mitochondriales s’observent dans la neurodégénérescence, l’insuffisance cardiaque et les néphropathies.[32][33][34]
Lysosomes, autophagie et peroxysomes
Les lysosomes sont des vésicules à membrane unique dont la lumière acide (pH 4,5–5, entretenu par la pompe à protons V-ATPase) contient plus de 50 hydrolases. Le matériel y parvient par endocytose (récepteurs et liquide via endosomes précoces puis tardifs), par phagocytose (bactéries, cellules mortes chez le macrophage) et par autophagie. La maturation endosome–lysosome est orchestrée par les GTPases Rab5 puis Rab7. Le déficit d’une enzyme lysosomale cause une maladie de surcharge (Gaucher, Tay-Sachs).[35][36]
Dans l’autophagie, une double membrane englobe une portion de cytoplasme, des agrégats protéiques ou des organites lésés pour former un autophagosome, qui fusionne avec un lysosome ; les produits sont recyclés. C’est un mécanisme vital pendant le jeûne et le principal contrôle qualité des neurones, qui ne peuvent diluer leurs déchets par la division ; sa défaillance participe aux maladies d’Alzheimer, de Parkinson et de Huntington.[37][38][39]
Les peroxysomes sont de petites vésicules (0,2–1 µm) contenant des oxydases productrices de H₂O₂ et la catalase qui le détruit. Ils β-oxydent les acides gras à très longue chaîne, α-oxydent l’acide phytanique et synthétisent plasmalogènes (lipides majeurs de la myéline) et acides biliaires. Leurs protéines sont importées du cytosol par les peroxines (gènes PEX), dont les déficits causent les maladies de la biogenèse des peroxysomes comme le syndrome de Zellweger.[40][41][42]
Cytosquelette
Trois systèmes de filaments composent le cytosquelette. Les microfilaments d’actine (7 nm), denses dans le cortex sous-membranaire, construisent microvillosités, lamellipodes et anneau de cytodiérèse et produisent une force avec la myosine. Les microtubules (25 nm), tubes creux de tubuline α/β, croissent depuis le centrosome extrémité plus vers la périphérie ; ils s’allongent et s’effondrent sans cesse (« instabilité dynamique »), servent de rails aux kinésines (vers la périphérie) et dynéines (vers le centre) et forment le fuseau mitotique.[43]
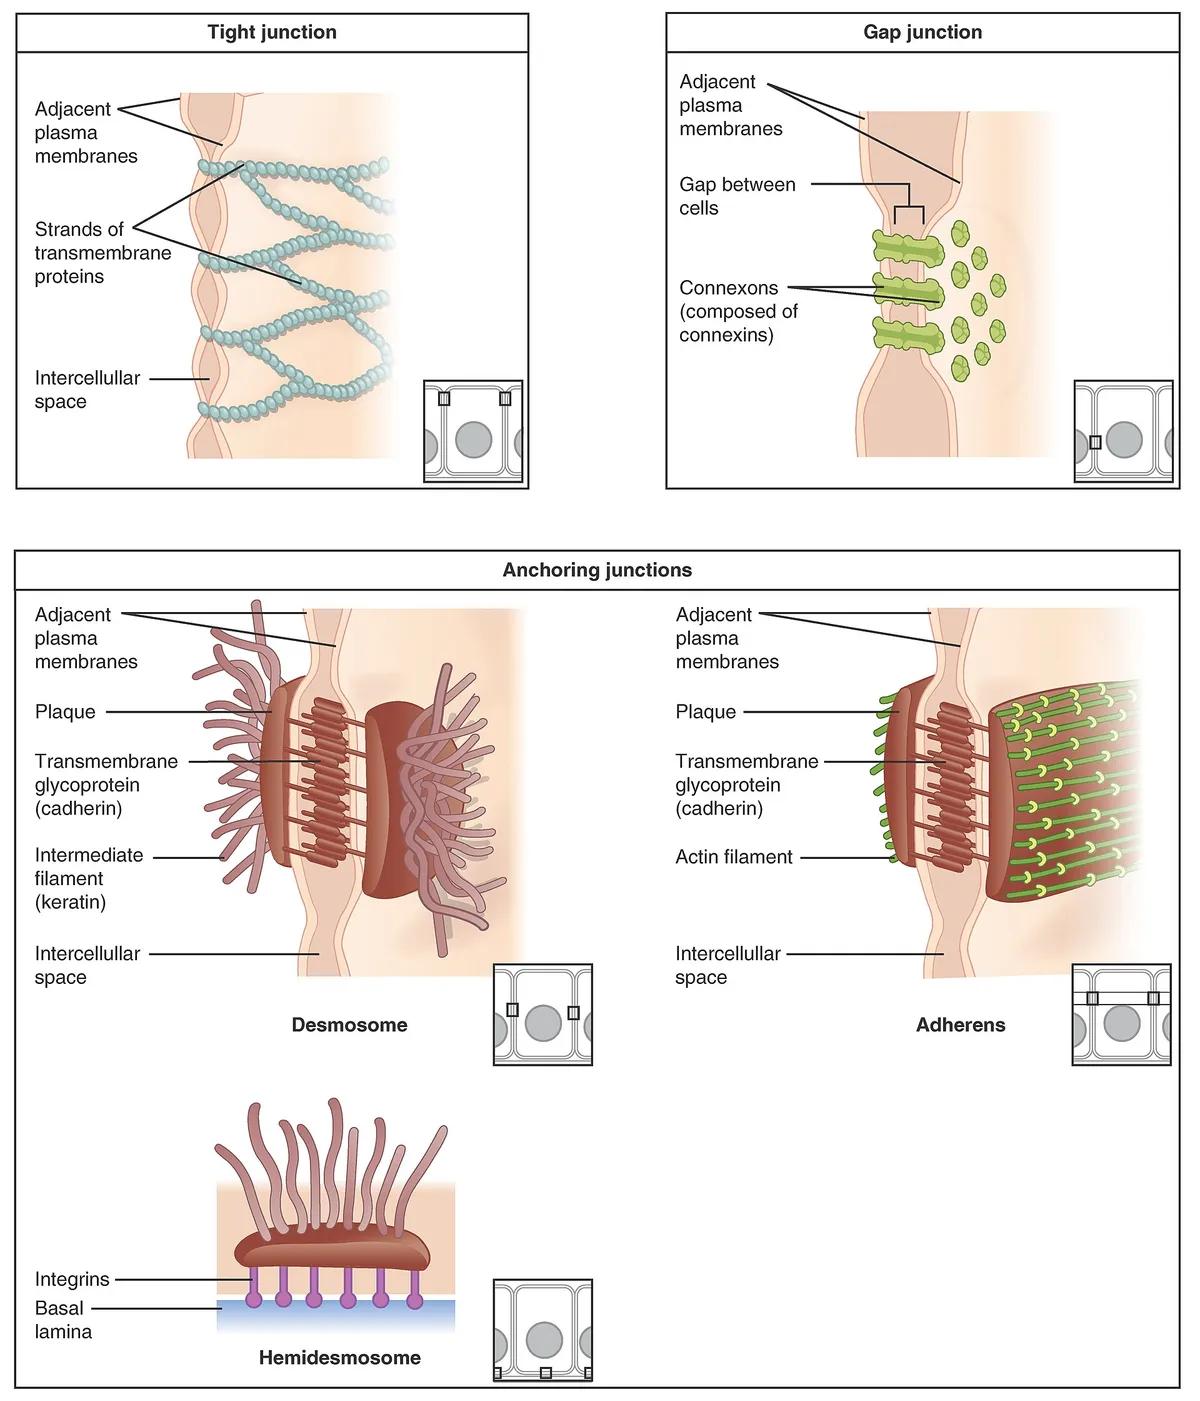
Les filaments intermédiaires (10 nm), très résistants, sont propres à chaque type cellulaire : kératines des épithéliums, vimentine des cellules mésenchymateuses, desmine du muscle, GFAP des astrocytes, neurofilaments des neurones, lamines du noyau. Ancrés aux desmosomes et hémidesmosomes, ils répartissent les tensions dans le tissu ; les mutations de kératine font cloquer la peau au moindre frottement. Spécifiques, ils servent de marqueurs tumoraux, et le neurofilament sanguin est un biomarqueur de lésion axonale.[44][45][46]
Le centrosome comprend deux centrioles orthogonaux, cylindres d’environ 250 nm de diamètre et 500 nm de long dont la paroi compte neuf triplets de microtubules, entourés du matériel péricentriolaire où sont nucléés les microtubules. Les centrioles servent aussi de corpuscules basaux des cils : l’axonème 9 + 2 bat grâce aux dynéines. Les cellules multiciliées des voies aériennes portent des centaines de cils synchrones qui déplacent le mucus ; les dyskinésies ciliaires causent bronchites, sinusites récidivantes et infertilité.[47][48][49]
Cycle cellulaire et division
Le cycle cellulaire comprend l’interphase (G1, S de réplication de l’ADN, G2) et la phase M. Des points de contrôle gouvernés par les complexes cycline–CDK n’autorisent la progression que si l’ADN est intact et entièrement copié ; le facteur MYC pousse la cellule dans le cycle et est suractivé dans de nombreux cancers. Les cellules très différenciées comme les neurones quittent définitivement le cycle (G0) ; les cellules sénescentes cessent de se diviser mais sécrètent des facteurs inflammatoires.[50][51]
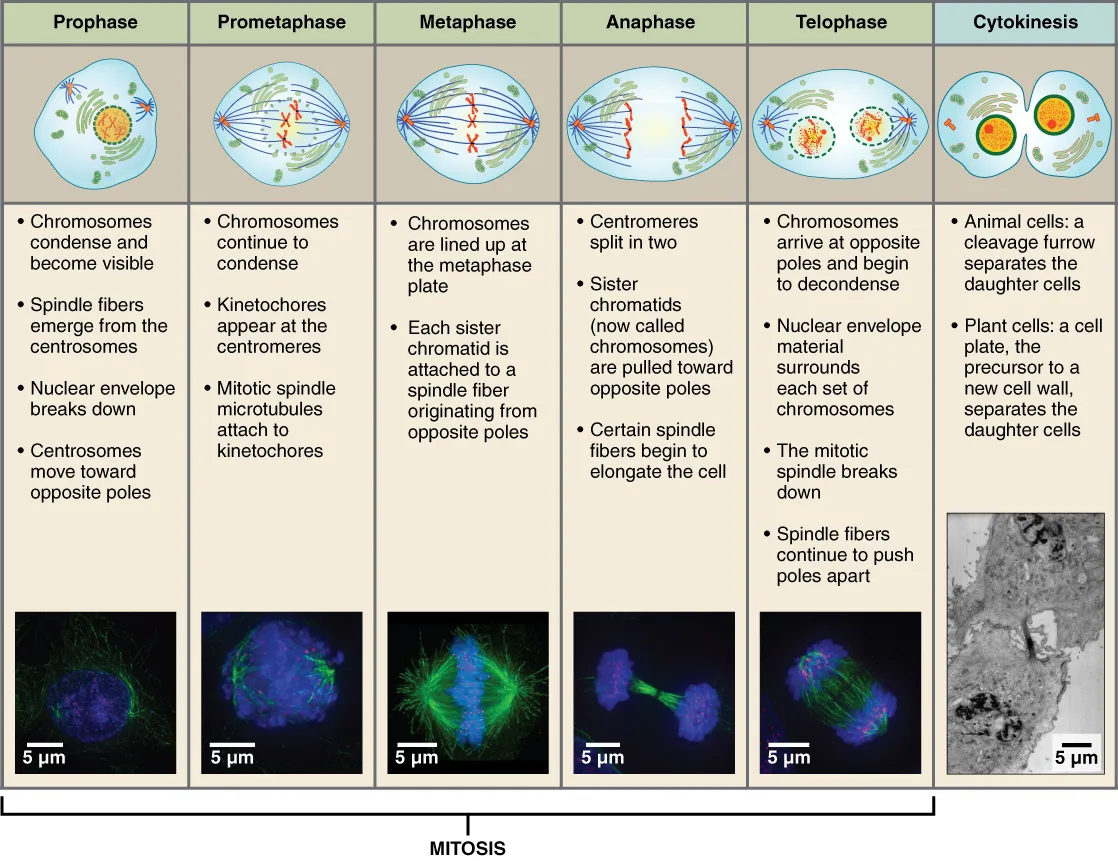
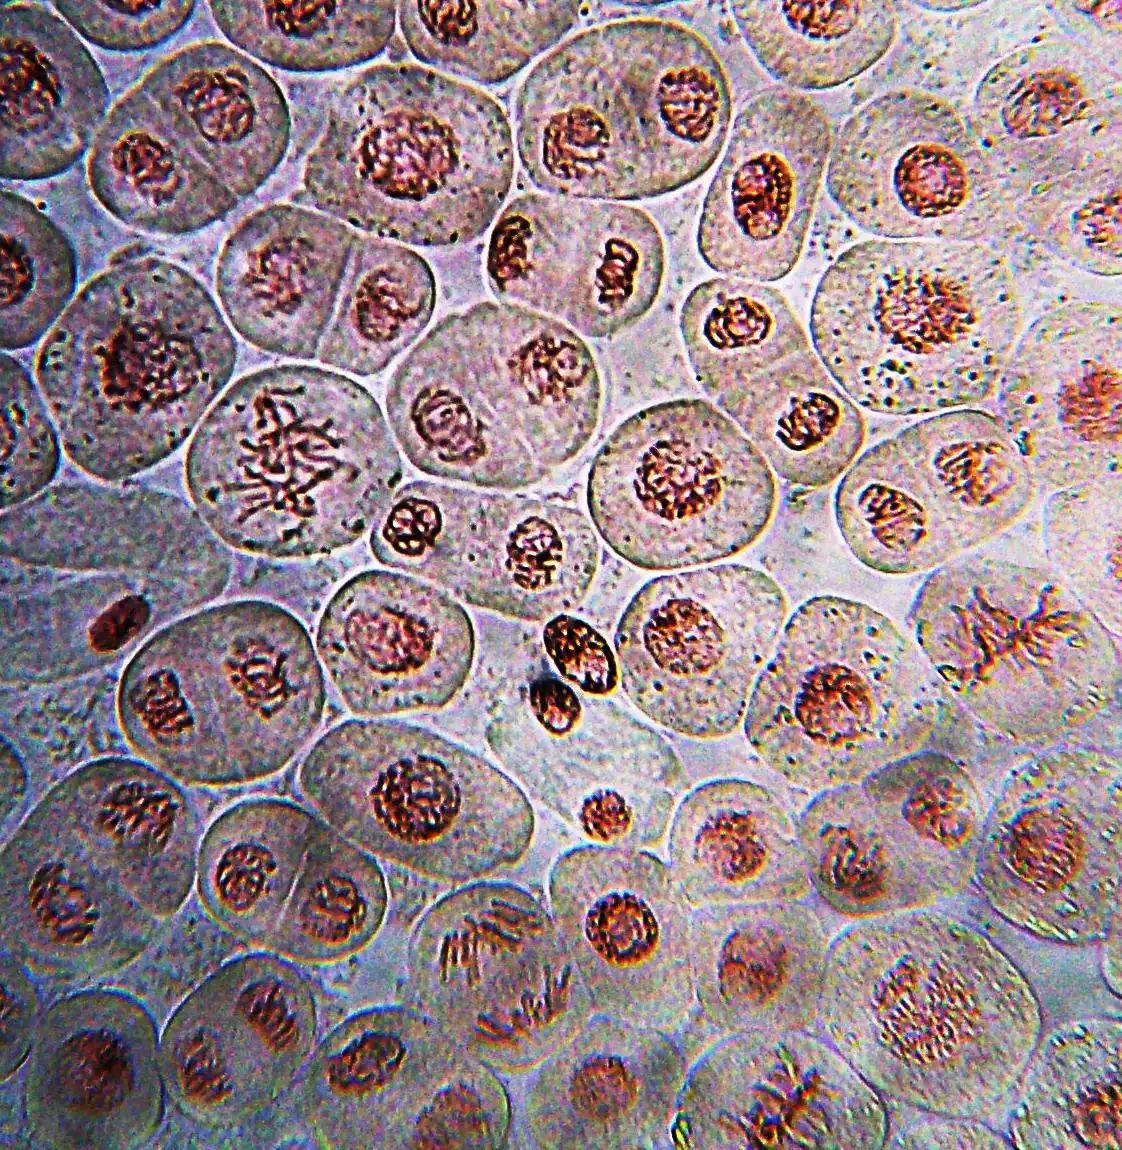
Pendant la mitose, les chromosomes se condensent et l’enveloppe nucléaire se désassemble (prophase, prométaphase) ; les microtubules du fuseau capturent les centromères par les kinétochores, complexes protéiques fixant les extrémités des microtubules. Le point de contrôle du fuseau maintient la métaphase jusqu’à l’attachement bipolaire de tous les chromosomes ; la cohésine est alors clivée, les chromatides sœurs se séparent (anaphase), l’enveloppe se reforme (télophase) et un anneau d’actomyosine scinde le cytoplasme. Les erreurs de ségrégation créent l’aneuploïdie, première cause de fausse couche et caractéristique de nombreuses tumeurs.[52][53][54][55]
Texte intégral de référence (StatPearls)
Texte original anglais des chapitres StatPearls sur ce sujet, reproduit à l’identique. La licence CC BY-NC-ND 4.0 n’autorise que la copie non modifiée : ni traduction ni abrègement ; la partie française ci-dessus est une rédaction propre avec citations.
Anatomy, Back, Nucleus PulposusNedresky D, Reddy V, Singh G · StatPearls 2023 · NBK535373 · 8k caractères
Chargement…
Nedresky D, Reddy V, Singh G. Anatomy, Back, Nucleus Pulposus. StatPearls [Internet]. Treasure Island (FL): StatPearls Publishing; 2023. NBK535373 · PMID 30570994 · CC BY-NC-ND 4.0. Reproduit à l’identique, sans modification.
Histology, Rough Endoplasmic ReticulumSanvictores T, Davis DD · StatPearls 2023 · NBK563126 · 7k caractères
Chargement…
Sanvictores T, Davis DD. Histology, Rough Endoplasmic Reticulum. StatPearls [Internet]. Treasure Island (FL): StatPearls Publishing; 2023. NBK563126 · PMID 33085273 · CC BY-NC-ND 4.0. Reproduit à l’identique, sans modification.
Organes de ce système
Références bibliographiques
Sources des valeurs et descriptions de cette page, indexées dans PubMed (National Library of Medicine, États-Unis).
- [1]Essay on Biomembrane StructureGerle C, The Journal of membrane biology 2019PMID 30877332
- [2]Lipid Rafts: Controversies Resolved, Mysteries RemainLevental I et al., Trends in cell biology 2020PMID 32302547
- [3]Lipid rafts as a membrane-organizing principleLingwood D et al., Science 2010PMID 20044567
- [4]CaveolaeParton RG et al., Current biology 2018PMID 29689223
- [5]The endothelial glycocalyx: composition, functions, and visualizationReitsma S et al., Pflugers Archiv 2007PMID 17256154
- [6]The glycocalyx: a novel diagnostic and therapeutic target in sepsisUchimido R et al., Critical care 2019PMID 30654825
- [7]Lamina-associated domains: Tethers and loosenersManzo SG et al., Current opinion in cell biology 2022PMID 35189475
- [8]Shared mechanisms in physiological and pathological nucleoplasmic reticulum formationDrozdz MM et al., Nucleus 2017PMID 27797635
- [9]The Structure of the Nuclear Pore Complex (An Update)Lin DH et al., Annual review of biochemistry 2019PMID 30883195
- [10]Structure, function and assembly of nuclear pore complexesPetrovic S et al., Nature reviews. Molecular cell biology 2026PMID 40926106
- [11]Aggregation, Phase Separation and Spatial Morphologies of the Assemblies of FG NucleoporinsZilman A, Journal of molecular biology 2018PMID 30017917
- [12]Chromosome territories and the global regulation of the genomeFritz AJ et al., Genes, chromosomes & cancer 2019PMID 30664301
- [13]Decoding the organization, dynamics, and function of the 4D genomeAboelnour E et al., Developmental cell 2021PMID 33984271
- [14]The nucleolusPederson T, Cold Spring Harbor perspectives in biology 2011PMID 21106648
- [15]Eukaryotic Ribosome AssemblyVanden Broeck A et al., Annual review of biochemistry 2024PMID 38768392
- [16]Histology, Rough Endoplasmic ReticulumSanvictores T et al., StatPearls 2023PMID 33085273
- [17]The endoplasmic reticulum: structure, function and response to cellular signalingSchwarz DS et al., Cellular and molecular life sciences 2016PMID 26433683
- [18]Structure and function of ER membrane contact sites with other organellesPhillips MJ et al., Nature reviews. Molecular cell biology 2016PMID 26627931
- [19]Endoplasmic reticulum-mitochondria contacts: function of the junctionRowland AA et al., Nature reviews. Molecular cell biology 2012PMID 22992592
- [20]Zooming into lipid droplet biology through the lens of electron microscopyDudka W et al., FEBS letters 2024PMID 38726814
- [21]Making COPII coatsKirchhausen T, Cell 2007PMID 17604713
- [22]The Golgi complex: a hub of the secretory pathwayPark K et al., BMB reports 2021PMID 33612152
- [23]Golgi glycosylationStanley P, Cold Spring Harbor perspectives in biology 2011PMID 21441588
- [24]Mechanistic insights into cargo sorting and export from the Golgi apparatusWatson ET et al., Nature reviews. Molecular cell biology 2025PMID 41214333
- [25]Mitochondrial proteins: from biogenesis to functional networksPfanner N et al., Nature reviews. Molecular cell biology 2019PMID 30626975
- [26]Structure and Function of the Mitochondrial RibosomeGreber BJ et al., Annual review of biochemistry 2016PMID 27023846
- [27]Kinetic Mathematical Modeling of Oxidative Phosphorylation in Cardiomyocyte MitochondriaTseng WW et al., Cells 2022PMID 36552784
- [28]Molecular mechanisms of mitochondrial dynamicsTábara LC et al., Nature reviews. Molecular cell biology 2025PMID 39420231
- [29]The cell biology of mitochondrial membrane dynamicsGiacomello M et al., Nature reviews. Molecular cell biology 2020PMID 32071438
- [30]Mitochondrial Machineries for Protein Import and AssemblyWiedemann N et al., Annual review of biochemistry 2017PMID 28301740
- [31]Mechanisms of mitophagyYoule RJ et al., Nature reviews. Molecular cell biology 2011PMID 21179058
- [32]Mitochondria and cell death-associated inflammationVringer E et al., Cell death and differentiation 2023PMID 36447047
- [33]Mitochondria in disease: changes in shapes and dynamicsJenkins BC et al., Trends in biochemical sciences 2024PMID 38402097
- [34]Mitochondrial dysfunction and the AKI-to-CKD transitionJiang M et al., American journal of physiology. Renal physiology 2020PMID 33073587
- [35]Rab GTPase Function in Endosome and Lysosome BiogenesisLangemeyer L et al., Trends in cell biology 2018PMID 30025982
- [36]Lysosomal quality control ReviewHenn D et al., Autophagy 2025PMID 39968899
- [37]Autophagy pathway: Cellular and molecular mechanismsYu L et al., Autophagy 2018PMID 28933638
- [38]Mechanisms of autophagy-lysosome dysfunction in neurodegenerative diseasesNixon RA et al., Nature reviews. Molecular cell biology 2024PMID 39107446
- [39]Autophagy genes in biology and diseaseYamamoto H et al., Nature reviews. Genetics 2023PMID 36635405
- [40]Peroxisome: Metabolic Functions and BiogenesisOkumoto K et al., Advances in experimental medicine and biology 2020PMID 33417203
- [41]Peroxisomes: a nexus for lipid metabolism and cellular signalingLodhi IJ et al., Cell metabolism 2014PMID 24508507
- [42]Alpha-oxidationJansen GA et al., Biochimica et biophysica acta 2006PMID 16934890
- [43]Microtubules and Microtubule-Associated ProteinsGoodson HV et al., Cold Spring Harbor perspectives in biology 2018PMID 29858272
- [44]Plasticity of cytoplasmic intermediate filament architecture determines cellular functionsSchwarz N et al., Current opinion in cell biology 2023PMID 37918274
- [45]GFAP at 50Messing A et al., ASN neuro 2020PMID 32811163
- [46]Neurofilaments as biomarkers in neurological disorders - towards clinical applicationKhalil M et al., Nature reviews. Neurology 2024PMID 38609644
- [47]Centriole structureWiney M et al., Philosophical transactions of the Royal Society of London. Series B, Biological sciences 2014PMID 25047611
- [48]Multiciliated cellsBrooks ER et al., Current biology 2014PMID 25291643
- [49]Towards an atomic model of a beating ciliary axonemeGrossman-Haham I, Current opinion in structural biology 2023PMID 36586349
- [50]Myc and cell cycle controlBretones G et al., Biochimica et biophysica acta 2015PMID 24704206
- [51]A guide to assessing cellular senescence in vitro and in vivoGonzález-Gualda E et al., The FEBS journal 2021PMID 32961620
- [52]PrometaphaseFerreira LT et al., Seminars in cell & developmental biology 2021PMID 34127384
- [53]The kinetochoreCheeseman IM, Cold Spring Harbor perspectives in biology 2014PMID 24984773
- [54]Mitotic genome foldingHirano T, The Journal of cell biology 2025PMID 40492990
- [55]Human aneuploidy: mechanisms and new insights into an age-old problemNagaoka SI et al., Nature reviews. Genetics 2012PMID 22705668